Материал: билеты по биологии
Анаэробное дыхание
Большинство анаэробов — это микроорганизмы. Однако к организмам, использующим анаэробное дыхание, относятся также дрожжи, ряд червей-паразитов. Способностью к анаэробному дыханию также обладают определенные ткани. Например, мышечные клетки, которые периодически могут испытывать недостаток кислорода.
При анаэробном дыхании в окислительных реакциях акцептор водорода НАД не передает водород в конечном итоге на кислород, которого в данном случае нет.
В качестве акцептора водорода может быть использована пировиноградная кислота, образующаяся при гликолизе.
У дрожжей пируват сбраживается до этанола (спиртовое брожение). При этом в процессе реакций образуется также углекислый газ и используется НАД:
CH3COCOOH (пируват) → CH3CHO (ацетальдегид) + CO2
CH3CHO + НАД · H2 → CH3CH2OH (этанол) + НАД
Молочнокислое брожение происходит в животных клетках, испытывающих временный недостаток кислорода, и у ряда бактерий:
CH3COCOOH + НАД · H2 → CH3CHOHCOOH (молочная кислота) + НАД
Оба брожения не дают выхода АТФ. Энергию в данном случае дает только гликолиз, и составляет она всего две молекулы АТФ. Значительная часть энергии глюкозы так и не извлекается. Поэтому анаэробное дыхание считается малоэффективным.
20 Вопрос. Фотосинтез.
Фотосинтез — это преобразование энергии света в энергию химических связей органических соединений.
Фотосинтез характерен для растений, в том числе всех водорослей, ряда прокариот, в том числе цианобактерий, некоторых одноклеточных эукариот.
В большинстве случаев при фотосинтезе в качестве побочного продукта образуется кислород (O2). Однако это не всегда так, поскольку существует несколько разных путей фотосинтеза. В случае выделения кислорода его источником является вода, от которой на нужды фотосинтеза отщепляются атомы водорода.
Фотосинтез состоит из множества реакций, в которых участвуют различные пигменты, ферменты, коферменты и др. Основными пигментами являются хлорофиллы, кроме них — каротиноиды и фикобилины.
В природе распространены два пути фотосинтеза растений: C3 и С4. У других организмов есть своя специфика реакций. Все, что объединяет эти разные процессы под термином «фотосинтез», – во всех них в общей сложности происходит преобразование энергии фотонов в химическую связь. Для сравнения: при хемосинтезе происходит преобразование энергии химической связи одних соединений (неорганических) в другие — органические.
Выделяют две фазы фотосинтеза — световую и темновую. Первая зависит от светового излучения, которое необходимо для протекания реакций. Темновая фаза является светонезависимой.
У растений фотосинтез протекает в хлоропластах. В результате всех реакций образуются первичные органические вещества, из которых потом синтезируются углеводы, аминокислоты, жирные кислоты и др. Обычно суммарную реакцию фотосинтеза пишут в отношении глюкозы — наиболее распространенного продукта фотосинтеза:
6CO2 + 6H2O → C6H12O6 + 6O2
Атомы кислорода, входящие в молекулу O2, берутся не из углекислого газа, а из воды. Углекислый газ – источник углерода, что более важно. Благодаря его связыванию у растений появляется возможность синтеза органики.
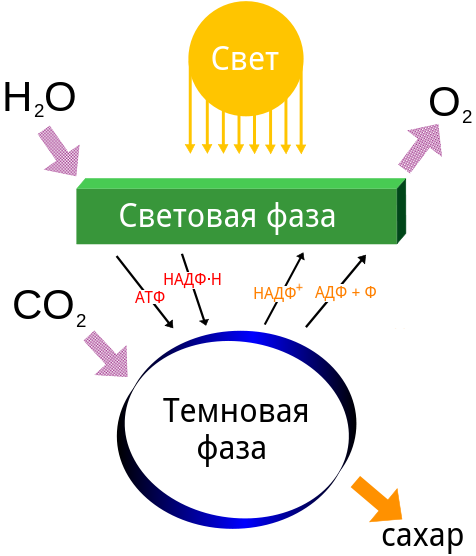
Световая фаза фотосинтеза
Эта фаза осуществляется на мембранах тилакойдов. Тилакойды это структуры, находящиеся внутри хлоропластов и ограниченные мембраной.
Порядок процессов световой фазы фотосинтеза выглядит так:
-
Свет попадает на молекулу хлорофилла, поглощается зеленым пигментом, чем приводит его в возбужденное состояние. Электрон, который входит в эту молекулу переходит на более высокий уровень и берет участие в процессе синтеза.
-
Идет расщепление воды, во время которого протоны, под действием электронов преобразуются в атомы водорода, которые впоследствии расходуются на синтез углеводов.
-
На последнем этапе световой фазы фотосинтеза происходит синтез АТФ (Аденозинтрифосфат). АТФ представляет собой органическое вещество, играющее роль своего рода аккумулятора энергии в биологических процессах.
Темновая фаза фотосинтеза
Эта фаза фотосинтеза протекает в стромах хлоропластов. Именно в ее ходе происходит выделение кислорода, а также синтез глюкозы. Можно подумать исходя из названия, что темновая фаза фотосинтеза происходит исключительно в темное время суток. На самом деле это не так, синтез глюкозы происходит круглосуточно, просто на этом этапе энергия света больше не расходуется и попросту она не нужна.
Условия, необходимые для фотосинтеза
Ниже приведены условия, которые необходимы растениям для осуществления процесса фотосинтеза:
-
Углекислый газ. Бесцветный природный газ без запаха, обнаруженный в воздухе и имеет научное обозначение CO2. Он образуется при горении углерода и органических соединений, а также возникает в процессе дыхания.
-
Вода. Прозрачное жидкое химическое вещество без запаха и вкуса (в нормальных условиях).
-
Свет. Хотя искусственный свет также подходит для растений, естественный солнечный свет, как правило, создает лучшие условия для фотосинтеза, потому что в нем присутствует природное ультрафиолетовое излучение, которое оказывает положительное влияние на растения.
-
Хлорофилл. Это зеленый пигмент, найденный в листьях растений.
-
Питательные вещества и минералы. Химические вещества и органические соединения, которые корни растений поглощают из почвы.
21 Вопрос. Уровни компактизации хроматина.
Структурная организация хроматина.
Хроматин в зависимости от периода и фазы клеточного цикла меняет свою организацию. В интерфазе он выявляется в виде глыбок, рассеянных в нуклеоплазме ядра(в ядерном соке). При переходе клетки к митозу, особенно в метафазе, хроматин приобретает вид интенсивно окрашенных телец — хромосом. Интерфазную и метафазную формы существования хроматина рассматривают как два различных состояния одного и того же вещества, связанных в митотическом цикле взаимопереходами,и в основе обеих эти форм лежит одна и та же элементарная нитчатая структура. Т.е хроматин представляет собой спирализованную нить.
Уровни компактизации (спирализации) хроматина.
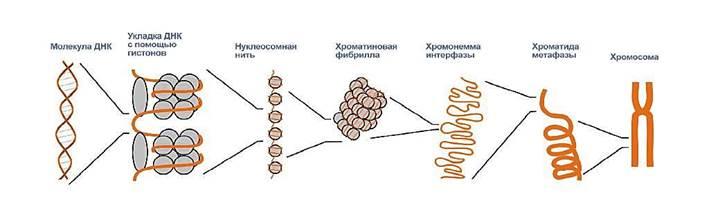
1)Первый уровень спирализации–образование двойной спиралиДНК, построенной по принципу комплементарности. (открыт впервые Уотсоном и Криком)
2)Второй уровень (упаковка молекулы ДНК в нуклеосомную нить с помощью гистоновых и негистоновых белков).
Нуклеосомная нить. Этот уровень организации хроматина обеспечивается четырьмя видами нуклеосомных гистонов: Н2А, Н2В, НЗ, Н4. Они образуют напоминающие по форме шайбу белковые тела — коры, состоящие из восьми молекул (по две молекулы каждого вида гистонов) Молекула ДНК соединяется с белковыми корами, спирально накручиваясь на них. При этом в контакте с каждым кором оказывается участок ДНК, состоящий из 146 пар нуклеотидов (п.н.). Свободные от контакта с белковыми телами участки ДНК называют связующими или линкерными. Они включают от 15 до 100 п.н. (в среднем 60 п.н.) в зависимости от типа клетки. Отрезок молекулы ДНК длиной около 200 п. н. вместе с белковым кором составляет нуклеосому. Благодаря такой организации в основе структуры хроматина лежит нить, представляющая собой цепочку повторяющихся единиц — нуклеосом. Вдоль нуклеосомной нити, напоминающей цепочку бус, имеются области ДНК, свободные от белковых тел. Эти области, расположенные с интервалами в несколько тысяч пар нуклеотидов, играют важную роль в дальнейшей упаковке хроматина, так как содержат нуклеотидные последовательности, специфически узнаваемые различными негистоновыми белками. В результате нуклеосомной организации хроматина двойная спираль ДНК диаметром 2 нм приобретает диаметр 10—11 нм.
3)Третий уровень. Хроматиновая фибрилла (нуклеомерный уровень). Дальнейшая компактизация нуклеосомной нити обеспечивается гистоном Н1, который сближает белковые коры. В результате образуется более компактная структура, построенная, возможно, по типу соленоида. Такая Хроматиновая фибрилла, называемая также элементарной, имеет диаметр 20—30 нм
4)Четвертый уровень.Интерфазная хромонема(хромомерный). Скручивание самой нуклеосомной нити приводит к образованию элементарной хроматиновойфибриллы.Каждая хроматида состоит из одной фибриллы.
5)Пятый уровень (метафазная хроматида) – при дальнейшей упаковке хроматиновые фибриллы образуют петельные домены, внутри которых встречаются более конденсированные участки. Таким образом, упакованная хроматиновая фибрилла образует хроматиду, а две хроматиды одну хромосому.
22 Вопрос. Клеточный цикл.
Клеточный цикл — это период существования клетки от момента её образования путем деления материнской клетки до собственного деления или гибели.
Принято в жизненном цикле клеток эукариот выделять ряд определенных периодов, или фаз. Они характерны для всех делящихся клеток. Фазы обозначают G1, S, G2, M. Из фазы G1 клетка может уходить в фазу G0, оставаясь в которой, она не делится и во многих случаях дифференцируется. При этом некоторые клетки могут возвращаться из G0 в G1 и пройти по всем этапам клеточного цикла.
Буквы в аббревиатурах фаз – это первые буквы английских слов: gap (промежуток), synthesis (синтез), mitosis (митоз).
Период G1 – пресинтетический – начинается сразу как только клетка появилась. В этот момент она меньше по размеру, чем материнская, в ней мало веществ, недостаточно количество органоидов. Поэтому в G1 происходит рост клетки, синтез РНК, белков, построение органелл. Обычно G1 – самая длительная фаза жизненного цикла клетки.
S – синтетический период. Самый главный его отличительный признак – удвоение ДНК путем репликации. Каждая хромосома становится состоящей из двух хроматид. В этот период хромосомы по-прежнему деспирализованы. В хромосомах, кроме ДНК, много белков-гистонов. Поэтому в S-фазу гистоны синтезируются в большом количестве.
В постсинтетический период – G2 – клетка готовится к делению, обычно путем митоза. Клетка продолжает расти, активно идет синтез АТФ, могут удваиваться центриоли.
Далее клетка вступает в фазу клеточного деления – M. Здесь происходит деление клеточного ядра – кариокинез, после чего деление цитоплазмы – цитокинез. Завершение цитокинеза знаменует завершение жизненного цикла данной клетки и начало клеточных циклов двух новых.
Фаза G0 иногда называют периодом «отдыха» клетки. Клетка «выходит» из обычного цикла. В этот период клетка может приступить к дифференциации и уже никогда не вернуться к обычному циклу. Также в фазу G0 могут входить стареющие клетки.
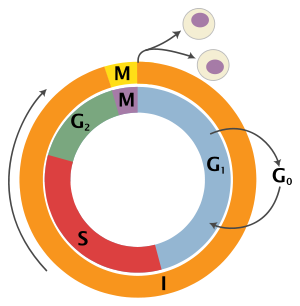
Переход в каждую последующую фазу цикла контролируется специальными клеточными механизмами, так называемыми чекпоинтами – контрольными точками. Чтобы наступила следующая фаза, в клетке должно быть все готово для этого, в ДНК не содержаться грубых ошибок и др.
Фазы G0, G1, S, G2 вместе формируют интерфазу - I.
Вопрос 23. Репликация.
Репликация — это механизм самокопирования и основное свойство наследственного материала, которым выступают молекулы ДНК.
Особенностью ДНК является то, что обычно ее молекулы состоит из двух комплементарных друг другу цепей, образующих двойную спираль. В процессе репликации цепи материнской молекулы ДНК расходятся, и на каждой строится новая комплементарная цепь. В результате из одной двойной спирали образуется две, идентичные исходной.
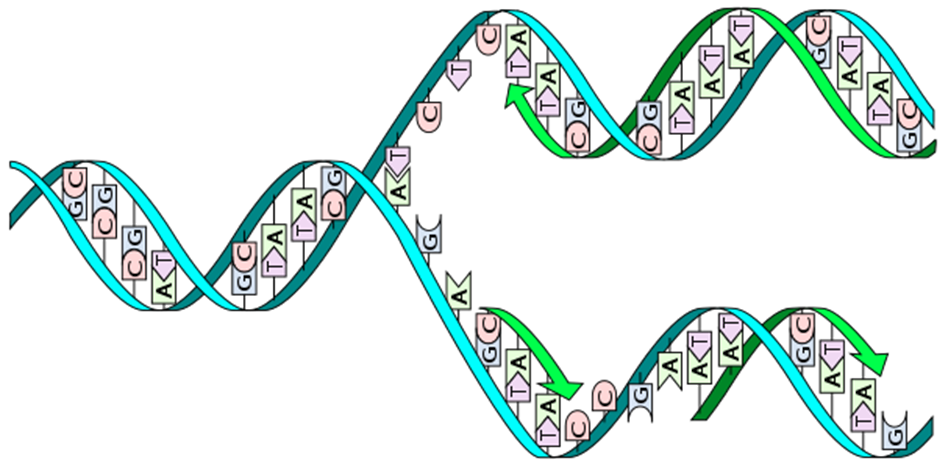
Таким образом, репликация ДНК происходит полуконсервативным способом.
У эукариот репликация происходит в S-фазе интерфазы клеточного цикла.
Механизм репликации.
Расхождение цепей исходной молекулы ДНК обеспечивает фермент геликаза, или хеликаза, который в определенных местах хромосом разрывает водородные связи между азотистыми основаниями ДНК. Хеликазы перемещаются по ДНК с затратой энергии АТФ.
Чтобы цепочки снова не соединились, они удерживаются на расстоянии друг от друга дестабилизирующими белками. Белки выстраиваются в ряд со стороны пентозо-фосфатного остова цепи. В результате образуются зоны репликации, называемые репликационными вилками.
Репликационные вилки образуются не в любых местах ДНК, а только в точках начала репликации, состоящих из определенной последовательности нуклеотидов (около 300 штук). Такие места
распознаются специальными белками, после чего образуется так называемый репликационный глаз, в котором расходятся две цепи ДНК.
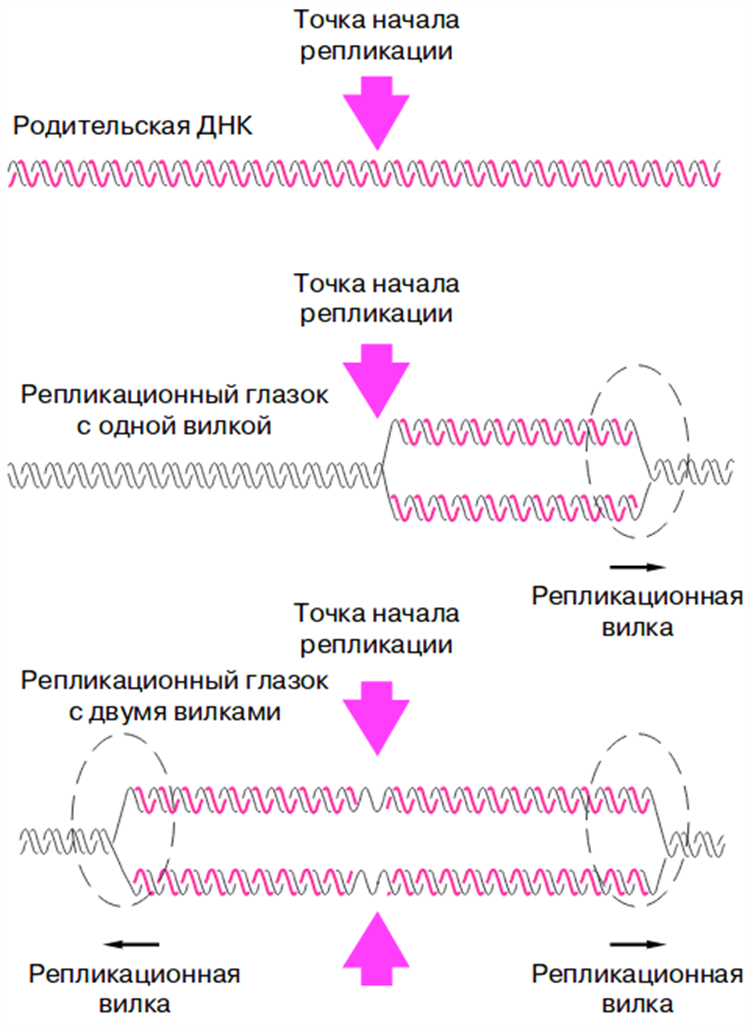
Репликон — единица репликации ДНК, от точки ее начала и до точки ее окончания.
Фермент топоизомераза разрывает одну из цепей ДНК. Отсоединенный участок проворачивается на 360° вокруг второй целой цепи и снова соединяется со своей цепью. Этим снимается напряжение, т. е. устраняются супервитки.
Каждая отдельная цепь ДНК старой молекулы используется в качестве матрицы для синтеза новой комплементарной себе цепи. Добавление нуклеотидов к растущей дочерней цепи обеспечивает фермент ДНК-полимераза.
В репликационной вилке к освободившимся водородным связям цепей согласно принципу комплиментарности присоединяются свободные нуклеотиды, находящиеся в нуклеоплазме. Присоединяющиеся нуклеотиды представляют собой дезоксирибонуклеозидтрифосфаты (дНТФ).
После образования водородных связей фермент ДНК-полимераза связывает нуклеотид фосфоэфирной связью с последним нуклеотидом синтезируемой дочерней цепи. При этом отделяется пирофосфат, включающий два остатка фосфорной кислоты, который потом расщепляется на отдельные фосфаты. Реакция отщепления пирофосфата в результате гидролиза энергетически выгодна, так как связь между первым, который уходит в цепь, и вторым фосфатными остатками богата энергией. Эта энергия используется полимеразой.
Полимераза не только удлиняет растущую цепь, но и способна отсоединять ошибочные нуклеотиды, т. е. обладает корректирующей способностью. Если последний нуклеотид, который должен быть присоединен к новой цепи, не комплементарен матричному, то полимераза его удалит.
ДНК-полимераза может присоединять нуклеотид только к -OH группе, находящейся при 3-м атоме углерода дезоксирибозы. Таким образом цепь синтезируется только со стороны своего 3´-конца. То есть синтез новой цепи ДНК идет в направлении от 5´- к 3´-концу. Поскольку в двуцепочечной молекуле ДНК цепи антипараллельны, то процесс синтеза по материнской, или матричной, цепи идет в обратном направлении – от 3´- к 5´-концу.
Синтез на матрице 5´→3´ выполняется небольшими участками —фрагментами Оказаки.
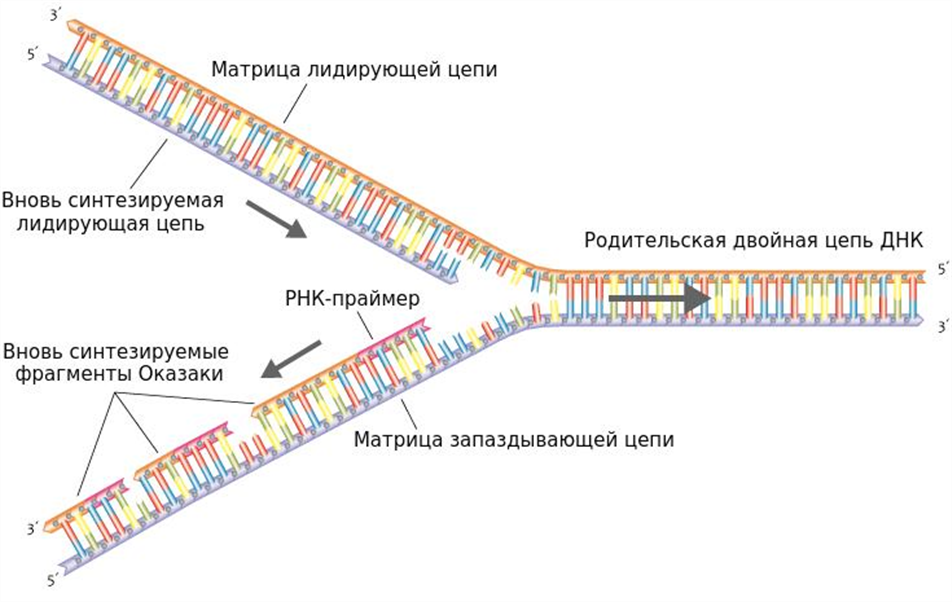
Праймер начинает синтез участка дочерней цепи ДНК. Им выступает короткая молекула РНК, синтезируемые ферментом РНК-праймазой и спаренная с матричной цепью ДНК. Синтез каждого участка Оказаки начинается со своей РНК-затравки. Та цепь, которая синтезируется непрерывно, обычно имеет один праймер.
После удаления праймеров и застраивания брешей ДНК-полимеразой отдельные участки дочерней цепи ДНК сшиваются между собой ферментом ДНК-лигазой.
У прокариот кольцевые молекулы ДНК представляют собой один репликон. У эукариот каждая хромосома может содержать множество репликонов. Поэтому синтез начинается в нескольких точках, одновременно или нет.