Материал: билеты по биологии
Вопрос 24. Репарация
Репарация- процесс, позволяющий живым организмам восстанавливать повреждения, возникающие в ДНК, называют репарацией .
Все репарационные механизмы основаны на том, что ДНК - двухцепочечная молекула, т.е. в клетке есть 2 копии генетической информации. Если нуклеотидная последовательность одной из двух цепей оказывается повреждённой, информацию можно восстановить, так как вторая (комплементарная) цепь сохранена.
Процесс репарации происходит в несколько этапов. На первом этапе выявляется нарушение комплементарности цепей ДНК. В ходе второго этапа некомплементарный нуклеотид или только основание устраняется, на третьем и четвёртом этапах идёт восстановление целостности цепи по принципу комплементарности. Однако в зависимости от типа повреждения количество этапов и ферментов, участвующих в его устранении, может быть разным. Очень редко происходят повреждения, затрагивающие обе цепи ДНК. Такие повреждения в половых клетках не репарируются, так как для осуществления сложной репарации с участием гомологичной рекомбинации требуется наличие диплоидного набора хромосом.
Основные типы повреждения ДНК
• Повреждение одиночных нуклеотидов
• Повреждение пары нуклеотидов
• Разрыв цепи ДНК
• Образование поперечных сшивок между основаниями одной цепи или разных цепей ДНК
Типы репарации у прокариот
Прямая репарация — наиболее простой путь устранения повреждений в ДНК, в котором обычно задействованы специфические ферменты, способные быстро (как правило, в одну стадию) устранять соответствующее повреждение, восстанавливая исходную структуру нуклеотидов. Так действует, например, O6-метилгуанин-ДНК-метилтрансфераза.
Эксцизионная репарация: процесс с участием ферментативной системы, которая удаляет короткую однонитевую последовательность двунитевой ДНК , содержащей ошибочно спаренные или поврежденные основания , и замещает их путем синтеза последовательности, комплементарной оставшейся нити. Этот тип репарации базируется на распознавании модифицированного основания различными гликозилазами, белками, расщепляющими N-гликозидную связь этого основания с остатком фосфорной кислоты молекулы ДНК. При этом существуют гликозилазы, специфически распознающие присутствие в ДНК определенных модифицированных оснований (оксиметилурацила, гипоксантина, 5-метилурацила, 3-метиладенина, 7-метилгуанина).
Пострепликативная репарация Tип репарации, имеющей место в тех случаях, когда процесс эксцизионной репарации недостаточен для полного исправления повреждения: после репликации с образованием ДНК, содержащей поврежденные участки, образуются одноцепочечные бреши, заполняемые в процессе гомологичной рекомбинации при помощи белка RecA. Это единственный тип репарации, не имеющий этапа узнавания повреждения.
У эукариот к ним добавляется еще две:
Мисмэтч репарация (репарация ошибочно спаренных нуклеотидов)
Тогда, когда образуются некомплементарные пары. Неправильное спаривание затрагивает только дочернюю цепь. Система репарации мисмэтч должна найти дочернюю цепь и произвести замену некомплементарных нуклеотидов.
SOS -репарация
Обнаружена в 1974 г. М.Радманом. Когда повреждений в ДНК настолько много, что они угрожают жизни клетки. Индуцируется синтез белков, которые присоединяются к ДНК-П комплексу и строят дочернюю цепь ДНК напротив дефектной матричной. В результате ДНК удваивается с ошибкой и может произойти клеточное деление. Но если были задеты жизненно важные функции клетка погибнет.
РЕПАРАЦИЯ ДНК И НАСЛЕДСТВЕННЫЕ БОЛЕЗНИ ЧЕЛОВЕКА
Нарушение системы репарации у человека является причиной:
• Преждевременного старения
• Онкозаболеваний
• Аутоиммунных заболеваний (ревматоидный артрит, СКВ, болезнь Альцгеймера)
Вопрос 25. Одномембранные оргоноиды клетки их строение и функции.
|
Органоиды клетки |
Особенности строения |
Функции |
|
Эндоплазматическая
сеть (ЭПС): - ЭПС шероховатая
(гранулированная), 1 - ЭПС гладкая
(агранулярная), 2 |
Система многочисленных канальцев и полостей |
Синтез и транспорт органических веществ в цитоплазме клетки |
|
На мембранах находятся рибосомы |
Синтез белков на прикрепленных к мембране рибосомах, объединенных в комплексы - полисомы |
|
|
Мембраны гладкие |
Синтез липидов и углеводов |
|
|
Комплекс
Гольджи |
Уплощенные полости, сложенные стопкой, от которых отделяются пузырьки |
Накопление веществ, синтезируемых на мембранах ЭПС, «упаковка» органических соединений в мембранные пузырьки, которые разносятся по клетке; выведение веществ из клетки. Формирование лизосом |
|
Комплекс Гольджи и эндоплазматическая сеть тесно связаны между собой; их совместная деятельность обеспечивает синтез и преобразование веществ в клетке, их изоляцию, накопление и транспорт. |
|
|
|
Лизосомы (от греч. lysis – растворение, soma – тело) |
Пузырьки овальной формы, содержащие 30-50 ферментов |
Ферменты расщепляют органические вещества; происходит разрушение отмерших органоидов клетки и уничтожение отработавших клеток, осуществляется самопереваривание клетки —автолиз; с помощью лизосом уничтожаются целые комплексы клеток и органы. Например, когда головастик превращается в лягушку, лизосомы, находящиеся в клетках хвоста, переваривают его: хвост исчезает, а образовавшиеся во время этого процесса вещества всасываются и используются другими клетками тела |
|
Вакуоли: - центральная в растительной клетке - пищеварительная в клетке животных - выделительная у простейших |
Полости, содержащие жидкость с различными растворенными веществами |
|
|
Заполнена клеточным соком (растворенные органические и неорганические вещества), формируется при участии ЭПС |
Накопление питательный веществ, регуляция водно-солевого обмена, поддержание тургорного давления |
|
|
Содержит литические ферменты и пищевые частички |
Внутриклеточное пищеварение |
|
|
Содержит воду и растворенные в ней продукты метаболизма |
Осморегуляция, удаление жидких продуктов метаболизма |
|
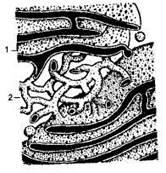 -
эндоплазматический ретикулум
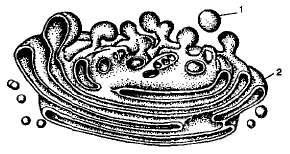 1
— пузырьки; 2 — цистерны
Вопрос 26. Строение интрефазного ядра эукариотической клетки.
Классификация структурных элементов интерфазного ядра:
-
хроматин;
-
ядрышко;
-
кариоплазма;
-
кариолемма.
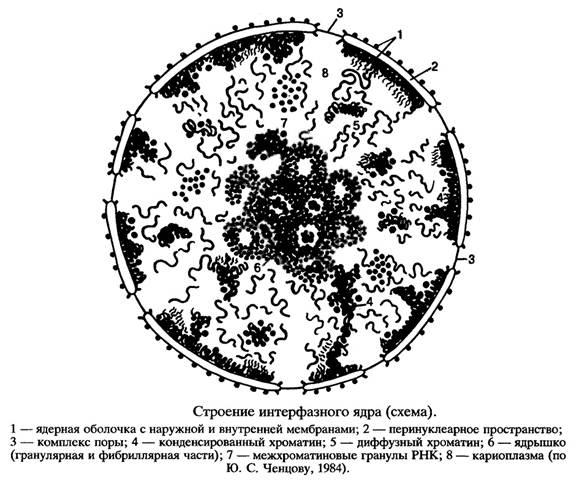
Хроматин представляет собой вещество, хорошо воспринимающие краситель (хромос), откуда и произошло его название. Хроматин состоит из хроматиновых фибрилл.
-
эухроматин — рыхлый или деконденсированный хроматин, слабо окрашивается основными красителями;
-
гетерохроматин — компактный или конденсированный хроматин, хорошо окрашивается этими же красителями.
При подготовке клетки к делению в ядре происходит спирализация хроматиновых фибрилл и превращение хроматина в хромосомы. После деления в ядрах дочерних клеток происходит деспирализация хроматиновых фибрилл и хромосомы снова преобразуются в хроматин. Следовательно, хроматин и хромосомы представляют собой различные фазы одного и того же вещества.
По химическому строению хроматин состоит из:
-
дезоксирибонуклеиновой кислоты (ДНК) 40 %;
-
белков около 60 %;
-
рибонуклеиновой кислоты (РНК) 1 %.
Ядерные белки представлены формами:
-
щелочными или гистоновыми белками80—85 %;
-
кислыми белками 15—20%.
Гистоновые белки связаны с ДНК и образуют полимерные цепи дезоксирибонуклеопротеида (ДНП), которые и представляют собой хроматиновые фибриллы, отчетливо видимые при электронной микроскопии. На определенных участках хроматиновых фибрилл осуществляется транскрипция с ДНК различных РНК, с помощью которых осуществляется затем синтез белковых молекул. Процессы транскрипции в ядре осуществляются только на свободных хромосомных фибриллах, то есть в эухроматине. На хроматиновых фибриллах в S-периоде интерфазы осуществляется также процессы редупликации ДНК.
Ядрышко — сферическое образование хорошо воспринимающее основные красители и располагающееся среди хроматина. В одном ядре может содержаться от 1 до 4-х и даже более ядрышек. В области ядрышкового анализатора осуществляется транскрипция с ДНК рибосомальной РНК. В ядрышке происходит соединение рибосомальной РНК с белком и образование субъединиц рибосом.
Кариоплазма состоит из воды, белков и белковых комплексов (нуклеопротеидов, гликопротеидов), аминокислот, нуклеотидов, сахаров. Белки кариоплазмы являются в основном белками-ферментами, в том числе ферментами гликолиза, осуществляющих расщепление углеводов и образование АТФ. Негистоновые (кислые) белки образуют в ядре структурную сеть (ядерный белковый матрикс), которая вместе с ядерной оболочкой принимает участие в создание внутреннего порядка. При участии кариоплазмы осуществляется обмен веществ в ядре, взаимодействие ядра и цитоплазмы.
Кариолемма — ядерная оболочка отделяет содержимое ядра от цитоплазмы (барьерная функция), в то же время обеспечивает регулируемый обмен веществ между ядром и цитоплазмой. Ядерная оболочка принимает участие в фиксации хроматина.
Кариолемма состоит из двух билипидных мембран — внешней и внутренней ядерной мембраны, разделенных перинуклеарным пространством.
Функции ядер:
-
хранение генетической информации, закодированной в молекулах ДНК;
-
репарация (восстановление) молекул ДНК после их повреждения с помощью специальныхрепаративных ферментов;
-
редупликация (удвоение) ДНК в синтетическом периоде интерфазы;
-
передача генетической информации дочерним клеткам во время митоза;
-
реализация генетической информации, закодированной в ДНК, для синтеза белка и небелковых молекул: образование аппарата белкового синтезаинформационной, рибосомальной и транспортной РНК.
Вопрос 27. Генетический материал прокариот.
Генетический материал вирусов представлен одной молекулой нуклеиновой кислоты (либо ДНК, либо РНК), окруженной защитной белковой оболочкой – капсидом. Вирусы могут существовать только как внутриклеточные паразиты.
Возможны два варианта развития вируса в клетке: либо интеграция с геномом хозяина – лизогения, либо синтез вирусных частиц на основе генетической программы вируса, но с помощью метаболической системы хозяина – лизис( разрушение клетки-хозяина).
Геном прокариот представлен одной кольцевой молекулой ДНК, формирующей компактную структуру нуклеоида посредством суперспирализации.
Главная особенность организации генома прокариот – это их объединение в группы, или кластеры, с общей регуляцией. Группа структурных генов прокариот, находящихся под контролем одного регуляторного участка, называется опероном . Организация генетического материала по типу оперона позволяет бактериям быстро переключать метаболизм с одного субстрата на другой.
Особый интерес представляют плазмиды – небольшие кольцевые молекулы ДНК внутри бактериальной клетки. Подобно вирусам, плазмиды способны либо интегрироваться с бактериальной ДНК, либо существовать обособленно от нее. Хорошо изучена плазмида F бактерии E. coli. Она представляет собой кольцевую молекулу ДНК и содержит более 60 генов. Плазмида F обеспечивает содержащим ее бактериальным клеткам возможность взаимодействовать с бесплазмидными бактериями и передавать им свою генетическую информацию.
Вопрос 28. Генетический материал эукариот. Особенности строения.
Генетический материал эукариот сконцентрирован в ядре и представлен хромосомами, в которых молекула ДНК образует сложный комплекс с различными белками.
Каждая клетка любого организма содержит определенный набор хромосом. Совокупность хромосом клетки называется кариотипом.
В кариотипе соматических клеток выделяются пары одинаковых (по форме и генному составу) хромосом – так называемые гомологичные хромосомы (1-я – материнская, 2-я – отцовская). Набор хромосом, содержащий пары гомологов, называется диплоидным (обозначается 2n). Половые клетки – гаметы, содержат половину диплоидного набора, по одной хромосоме из каждой пары гомологов. Такой набор называется гаплоидным (обозначается n).
Соединяются хроматиды в области центромеры (первичной перетяжки). В этой области при делении клетки на каждой сестринской хроматиде образуется фибриллярное тельце – кинетохор, к которому присоединяются нити веретена деления.
Концевые участки хромосом получили название теломеры. Они препятствуют слипанию хромосом, т. е. ответственны за их «индивидуальность». У взрослого организма с каждым новым делением клетки теряется участок теломеры. Потеря всей теломеры приводит к смерти клетки. Участок хроматиды между центромерой и теломерой называется плечом.
В ядрышке происходит синтез р-РНК и образование субъединиц рибосом.
Митохондрии имеют кольцевые мт-ДНК.
Хлоропласты также имеют собственную кольцевую ДНК. Митохондрии и хлоропласты имеют собственные системы синтеза белка и синтезируют ряд белков, поэтому их относят к так называемым полуавтономным структурам. Однако следует заметить, что более 95 % митохондриальных белков кодируются в ядре.
Вопрос 29. Рибосомы, их строение и функции.
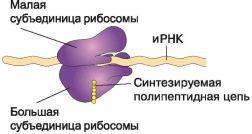
Рибосома=немембранные органоиды, функция которых – синтез белков. Каждая рибосома в рабочем состоянии состоит из двух субъединиц – большой и малой, в состав которых входят молекулы белка и рибосомальной РНК (рРНК). В цитоплазме рибосомы могут находиться в свободном состоянии или располагаться на шероховатых мембранах ЭПС. В зависимости от типа синтезируемого белка рибосомы могут «работать» поодиночке или объединяться в комплексы – полирибосомы. В таких комплексах рибосомы связаны одной молекулой иРНК.
Вопрос 30. Клеточные лизосомы.
Лизосома — это одномембранный органоид эукариотической клетки, имеющий в основном шаровидную форму и не превышающий по размеру 1 мкм. Характерны для клеток животных, где могут содержаться в больших количествах (особенно в клетках, способных к фагоцитозу). В растительных клетках многие функции лизосом выполняет центральная вакуоль.
Строение лизосомы
Элементарная мембрана лизосомы отграничивает от цитоплазмы несколько десятков гидролитических (пищеварительных) ферментов, расщепляющих белки, жиры, углеводы и нуклеиновые кислоты. Ферменты относятся к группам протеаз, липаз, нуклеаз, фосфатаз и др.
В отличие от гиалоплазмы, внутренняя среда лизосом имеет кислую реакцию, а содержащиеся здесь ферменты активны только при низком pH.
Изоляция ферментов лизосом необходима, иначе, оказавшись в цитоплазме, они могут разрушить клеточные структуры.
Образование лизосом
Лизосомы образуются в комплексе Гольджи. Ферменты (по-сути белки) лизосом синтезируются на шероховатой эндоплазматической сети, после чего транспортируются в Гольджи с помощью везикул (пузырьков, ограниченных мембраной). Здесь белки модифицируются, приобретают свою функциональную структуру, упаковываются в другие пузырьки – первичны лизосомы, – которые отрываются от аппарата Гольджи. Далее, превращаясь во вторичные лизосомы, выполняют функцию внутриклеточного переваривания. В некоторых клетках первичные лизосомы секретируют свои ферменты за пределы цитоплазматической мембраны.
Функции лизосом
О функциях лизосом говорит уже их название: lysis — расщепление, soma — тело.
При попадании в клетку питательных веществ, каких-либо микроорганизмов лизосомы принимают участие в их переваривании. Кроме того, они разрушают ненужные структуры самой клетки и даже целые органы организмов (например, хвост и жабры в процессе развития многих земноводных).
Ниже дается описание основным, но не единственным функциям лизосом.
Вопрос 31. Митоз.
В основе индивидуального развития всех организмов лежит клеточное деление. Время существования клетки от деления до деления называется клеточным (митотическим) циклом. Типичный митотический цикл эукариотической клетки состоит из 4 периодов.
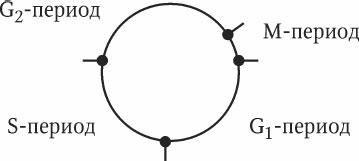
Пресинтетический период (G1) – наиболее длительный период клеточного цикла. Он характеризуется ростом клетки, накоплением РНК, АТФ, белков, необходимых для образования клеточных структур, подготовкой клетки к синтезу ДНК.
Синтетический период (S) – период синтеза ДНК и репликации хромосом. В этот период происходит также интенсивный синтез гистонов, их перемещение в ядро, где они связываются с реплицированной ДНК. К концу периода каждая хромосома состоит из двух хроматид, имеющих идентичные копии молекулы ДНК. Гнетический материал клетки удваивается.
Постсинтетический период (G2) – период формирования структур, необходимых для процесса деления клетки. Продолжается синтез РНК и белков. Запасается энергия в виде АТФ.
Периоды G1, S, G2 - интерфаза.
Период митоза (М) – период деления генетического материала и образования двух новых клеток. Этот период занимает менее 10 % времени клеточного цикла.
Митоз – основной способ деления эукариотической клетки. В нем выделяют 4 следующие друг за другом фазы: