Материал: билеты по биологии
17 Вопрос. Строение и функции Аппарата Гольджи.
Комплекс Гольджи представляет собой стопку дискообразных мембранных мешочков (цистерн), несколько расширенных ближе к краям, и связанную с ними систему пузырьков Гольджи. В растительных клетках обнаруживается ряд отдельных стопок (диктиосомы), в животных клетках часто содержится одна большая или несколько, соединённых трубками, стопок.
1. Накапливает и выводит органические вещества, синтезируемые в эндоплазматической сети
2. Образует лизосомы
3. Формирование углеводных компонентов гликокаликса — в основном, гликолипидов.
Лизосомы представляют собой неотъемлемую часть состава клетки. Они являются разновидностью везикул. Эти клеточные помощники, являясь частью вакуома, покрыты оболочкой из мембраны и наполнены гидролитическими ферментами. Важность существования лизосом внутри клетки обеспечена секреторной функцией, которая необходима в процессе фагоцитоза и аутофагоцитоза.
Выполняют пищеварительную функцию — переваривают пищевые частицы и удаляют отмершие органоиды.
Первичные лизосомы — это мелкие мембранные пузырьки, которые имеют диаметр около ста нм, заполненные гомогенным мелкодисперсным содержимым, являющим собой набор гидролитических ферментов. В лизосомах есть около сорока ферментов.
Вторичные лизосомы — это внутриклеточные пищеварительные вакуоли, ферменты которых поставляются первичными лизосомами, а материал для переваривания — эндоцитозной (пиноцитозной) вакуолью.
18 Вопрос. Митохондрии и хлоропласты как полуавтономные органеллы.
Митохондрии– это постоянные мембранные органеллы округлой или палочковидной (нередко ветвящейся) формы. Толщин – 0,5 мкм, длина – 5–7 мкм. Количество митохондрий в большинстве животных клеток – 150—1500; в женских яйцеклетках – до нескольких сотен тысяч, в сперматозоидах – одна спиральная митохондрия, закрученная вокруг осевой части жгутика.
Основные функции митохондрий:
1) играют роль энергетических станций клеткок. В них протекают процессы окислительного фосфорилирования (ферментативного окисления различных веществ с последующим накоплением энергии в виде молекул аденозинтрифосфата – АТФ);
2) хранят наследственный материал в виде митохондриаль-ной ДНК. Митохондрии для своей работы нуждаются в белках, закодированных в генах ядерной ДНК, так как собственная митохондриальная ДНК может обеспечить митохондрии лишь несколькими белками.
Побочные функции – участие в синтезе стероидных гормонов, некоторых аминокислот (например, глютаминовой).
Строение митохондрий
Митохондрия имеет две мембраны: наружную (гладкую) и внутреннюю (образующую выросты – листовидные (кристы) и трубчатые (тубулы)). Мембраны различаются по химическому составу, набору ферментов и функциям.
У митохондрий внутренним содержимым является матриксе – коллоидное вещество, в котором с помощью электронного микроскопа были обнаружены зерна диаметром 20–30 нм (они накапливают ионы кальция и магния, запасы питательных веществ, например, гликогена).
В матриксе размещается аппарат биосинтеза белка органеллы: 2–6 копий кольцевой ДНК, лишенной гистоновых белков (как у прокариот), рибосомы, набор т-РНК, ферменты редупликации, транскрипции, трансляции наследственной информации. Этот аппарат в целом очень похож на таковой у прокариот (по количеству, структуре и размерам рибосом, организации собственного наследственного аппарата и др.), что служит подтверждением симбиотической концепции происхождения эукариотической клетки.
В осуществлении энергетической функции митохондрий активно участвуют как матрикс, так и поверхность внутренней мембраны, на которой расположена цепь переноса электронов (цитохромы) и АТФ-синтеза, катализирующая сопряженное с окислением фосфорилирование АДФ, что превращает его в АТФ.
Митохондрии размножаются путем перешнуровки, поэтому при делении клеток они более или менее равномерно распределяются между дочерними клетками. Так, между митохондриями клеток последовательных генераций осуществляется преемственность.
Таким образом, митохондриям свойственна относительная автономность внутри клетки (в отличие от других органоидов). Они возникают при делении материнских митохондрий, обладают собственной ДНК, которая отличается от ядерной системой синтеза белка и аккумулирования энергии.
В транс-Гольджи сети происходит сортировка секреторных и лизосомных белков, отделяются вакуоли.
Экспортные белки выделяются из клетки в составе вакуолей.
Первичные лизосомы с гидролазами отделяются от аппарата Гольджи, сливаются сливаются с пиноцитозными вакуолями и образуются вторичные лизосомы.
Гладкий эндоплазматический ретикулум обеспечивает синтез и конденсацию липидов, депонирование ионов Ca2+, синтез и ресорбцию гликогена и др.
16 Вопрос. Строение и функции микротрубочек. Центриоль животных клеток.
Микротрубочки, - наиболее крупные компоненты цитоскелета. Они представляют собой полые цилиндрические образования, имеющие форму трубочек, длиной до нескольких микрометров (в жгутиках более 50 нм) диаметром около 24-25 нм, с толщиной стенки 5 нм и диаметром просвета 14-15 нм (рис. 3-14).
Стенка микротрубочки состоит из спиралевидно уложенных нитей - протофиламентов толщиной 5 нм (которым на поперечном разрезе соответствуют 13 субъединиц), образованных димерами из белковых молекул а~ и /3-тубулина.
Функции микротрубочек:
1) поддержание формы и полярности клетки, распределения ее компонентов
2) обеспечение внутриклеточного транспорта,
3) обеспечение движения ресничек, хромосом в митозе (формируют ахроматиновое веретено, необходимое для клеточного деления)
4) образование основы других органелл (центриолей, ресничек).
Расположение микротрубочек
Микротрубочки располагаются в цитоплазме в составе нескольких систем:
а) в виде отдельных элементов, разбросанных по всей цитоплазме и формирующих сети;
б) в пучках, где они связаны тонкими поперечными мостиками (в отростках нейронов, в составе митогяческого веретена, манжетки сперматиды, периферического "кольца" тромбоцитов);
в) частично сливаясь друг с другом с формированием пар, или дублетов (в аксонеме ресничек и жгутиков), и триплетов (в базальном тельце и центриоли).
Образование и разрушение микротрубочек.
Микротрубочки представляют собой лабильную систему, в которой имеется равновесие между их постоянной сборкой и диссоциацией. У большинства микротрубочек один конец (обозначаемый как "-") закреплен, а другой ("+") свободен и участвует в их удлинении или деполимеризации. Структурами, обеспечивающими образование микротрубочек, служат особые мелкие сферические тельца – сателлиты, отчего последние называют центрами организации микротрубочек (ЦОМТ). Сателлиты содержатся в базальных тельцах ресничек и клеточном центре. После полного разрушения микротрубочек ] в цитоплазме они отрастают от клеточного центра со скоростью около 1 мкм/мин., а их сеть вновь восстанавливается менее, чем за полтора часа. К ЦОМТ относят также и центромеры хромосом.
Связь микротрубочек с другими структурами клетки и между собой осуществляется посредством ряда белков, выполняющих различные функции.
1) Микротрубочки с помощью вспомогательных белков прикреплены к другим клеточным компонентам.
2) По своей длине микротрубочки образуют многочисленные боковые выросты (которые состоят из белков, ассоциированных с микротрубочками) длиной до нескольких десятков нанометров. Благодаря тому, что такие белки последовательно и обратимо связываются с органеллами, транспортными пузырьками, секреторными гранулами и другими образованиями, микротрубочки (которые сами не обладают сократимостью) обеспечивают перемещение указанных структур по цитоплазме.
3) Некоторые белки, ассоциированные с микротрубочками, стабилизируют их структуру, а связываясь с их свободными краями, препятствуют деполимеризации.
Угнетение самосборки микротрубочек посредством ряда веществ, являющихся ингибиторами митоза, вызывает избирательную гибель быстроделящихся клеток. Поэтому некоторые из таких веществ успешно используются для химиотерапии опухолей. Разрушение микротрубочек приводит к изменениям формы клетки и дезорганизации ее структуры и распределения органелл.
Световая фаза фотосинтеза
Эта фаза осуществляется на мембранах тилакойдов. Тилакойды это структуры, находящиеся внутри хлоропластов и ограниченные мембраной.
Порядок процессов световой фазы фотосинтеза выглядит так:
-
Свет попадает на молекулу хлорофилла, поглощается зеленым пигментом, чем приводит его в возбужденное состояние. Электрон, который входит в эту молекулу переходит на более высокий уровень и берет участие в процессе синтеза.
-
Идет расщепление воды, во время которого протоны, под действием электронов преобразуются в атомы водорода, которые впоследствии расходуются на синтез углеводов.
-
На последнем этапе световой фазы фотосинтеза происходит синтез АТФ (Аденозинтрифосфат). АТФ представляет собой органическое вещество, играющее роль своего рода аккумулятора энергии в биологических процессах.
Темновая фаза фотосинтеза
Эта фаза фотосинтеза протекает в стромах хлоропластов. Именно в ее ходе происходит выделение кислорода, а также синтез глюкозы. Можно подумать исходя из названия, что темновая фаза фотосинтеза происходит исключительно в темное время суток. На самом деле это не так, синтез глюкозы происходит круглосуточно, просто на этом этапе энергия света больше не расходуется и попросту она не нужна.
Условия, необходимые для фотосинтеза
Ниже приведены условия, которые необходимы растениям для осуществления процесса фотосинтеза:
-
Углекислый газ. Бесцветный природный газ без запаха, обнаруженный в воздухе и имеет научное обозначение CO2. Он образуется при горении углерода и органических соединений, а также возникает в процессе дыхания.
-
Вода. Прозрачное жидкое химическое вещество без запаха и вкуса (в нормальных условиях).
-
Свет. Хотя искусственный свет также подходит для растений, естественный солнечный свет, как правило, создает лучшие условия для фотосинтеза, потому что в нем присутствует природное ультрафиолетовое излучение, которое оказывает положительное влияние на растения.
-
Хлорофилл. Это зеленый пигмент, найденный в листьях растений.
-
Питательные вещества и минералы. Химические вещества и органические соединения, которые корни растений поглощают из почвы.
21 Вопрос. Уровни компактизации хроматина.
Структурная организация хроматина.
Хроматин в зависимости от периода и фазы клеточного цикла меняет свою организацию. В интерфазе он выявляется в виде глыбок, рассеянных в нуклеоплазме ядра(в ядерном соке). При переходе клетки к митозу, особенно в метафазе, хроматин приобретает вид интенсивно окрашенных телец — хромосом. Интерфазную и метафазную формы существования хроматина рассматривают как два различных состояния одного и того же вещества, связанных в митотическом цикле взаимопереходами,и в основе обеих эти форм лежит одна и та же элементарная нитчатая структура. Т.е хроматин представляет собой спирализованную нить.
Уровни компактизации (спирализации) хроматина.
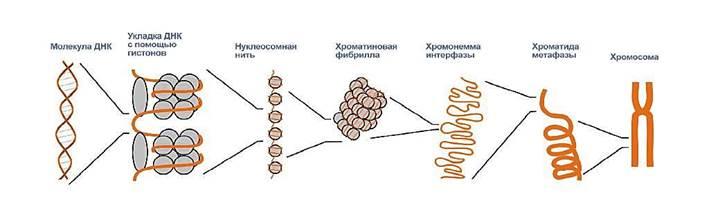
1)Первый уровень спирализации–образование двойной спиралиДНК, построенной по принципу комплементарности. (открыт впервые Уотсоном и Криком)
2)Второй уровень (упаковка молекулы ДНК в нуклеосомную нить с помощью гистоновых и негистоновых белков).
Нуклеосомная нить. Этот уровень организации хроматина обеспечивается четырьмя видами нуклеосомных гистонов: Н2А, Н2В, НЗ, Н4. Они образуют напоминающие по форме шайбу белковые тела — коры, состоящие из восьми молекул (по две молекулы каждого вида гистонов) Молекула ДНК соединяется с белковыми корами, спирально накручиваясь на них. При этом в контакте с каждым кором оказывается участок ДНК, состоящий из 146 пар нуклеотидов (п.н.). Свободные от контакта с белковыми телами участки ДНК называют связующими или линкерными. Они включают от 15 до 100 п.н. (в среднем 60 п.н.) в зависимости от типа клетки. Отрезок молекулы ДНК длиной около 200 п. н. вместе с белковым кором составляет нуклеосому. Благодаря такой организации в основе структуры хроматина лежит нить, представляющая собой цепочку повторяющихся единиц — нуклеосом. Вдоль нуклеосомной нити, напоминающей цепочку бус, имеются области ДНК, свободные от белковых тел. Эти области, расположенные с интервалами в несколько тысяч пар нуклеотидов, играют важную роль в дальнейшей упаковке хроматина, так как содержат нуклеотидные последовательности, специфически узнаваемые различными негистоновыми белками. В результате нуклеосомной организации хроматина двойная спираль ДНК диаметром 2 нм приобретает диаметр 10—11 нм.
19 Вопрос. Дыхание.
Клеточное дыхание — это окисление органических веществ в клетке, в результате которого синтезируются молекулы АТФ. Исходным сырьем (субстратом) обычно служат углеводы, реже жиры и еще реже белки. Наибольшее количество молекул АТФ дает окисление кислородом, меньшее – окисление другими веществами и переносом электронов.
Углеводы, или полисахариды, перед использованием в качестве субстрата клеточного дыхания распадаются до моносахаридов. Так у растений крахмал, а у животных гликоген гидролизуются до глюкозы.
Глюкоза является основным источником энергии почти для всех клеток живых организмов.
Первый этап окисления глюкозы — гликолиз. Он не требует кислорода и характерен как при анаэробном, так и аэробном дыхании.
Биологическое окисление
Клеточное дыхание включает в себя множество окислительно-восстановительных реакций, в которых происходит перемещение водорода и электронов от одних соединений (или атомов) к другим. При потери электрона каким-либо атомом происходит его окисление; при присоединении электрона — восстановление. Окисляемое вещество — это донор, а восстанавливаемое — акцептор водорода и электронов. Окислительно-восстановительные реакции, протекающие в живых организмах, носят название биологического окисления, или клеточного дыхания.
Обычно при окислительных реакциях происходит выделение энергии. Причина этого кроется в физических законах. Электроны в окисляемых органических молекулах находятся на более высоком энергетическом уровне, чем в продуктах реакции. Электроны, переходя с более высокого на более низкий энергетический уровень, высвобождают энергию. Клетка умеет фиксировать ее в связях молекул АТФ — универсальном «топливе» живого.
Наиболее распространенным в природе конечным акцептором электронов является кислород, который восстанавливается. При аэробном дыхании в результате полного окисления органических веществ образуются углекислый газ и вода.
Биологическое окисление протекает по-этапно, в нем участвуют множество ферментов и соединения, переносящие электроны. При ступенчатом окислении электроны перемещаются по цепи переносчиков. На определенных этапах цепи происходит выделение порции энергии, достаточной для синтеза АТФ из АДФ и фосфорной кислоты.
Биологическое окисление весьма эффективно по-сравнению с различными двигателями. Около половины выделяющейся энергии в конечном итоге фиксируется в макроэргических связях АТФ. Другая часть энергии рассеивается в виде тепла. Поскольку процесс окисления ступенчатый, то тепловая энергия выделяется понемногу и не повреждает клетки. В то же время она служит для поддержания постоянной температуры тела.
Аэробное дыхание
Различные этапы клеточного дыхания у аэробных эукариот происходят
-
в цитоплазме – гликолиз,
-
в матриксе митохондрий – цикл Кребса, или цикл трикарбоновых кислот,
-
на внутренней мембране митохондрий – окислительное фосфорилирование, или дыхательная цепь.
На каждом из этих этапов из АДФ синтезируется АТФ, больше всего на последнем. Кислород в качестве окислителя используется только на этапе окислительного фосфорилирования.
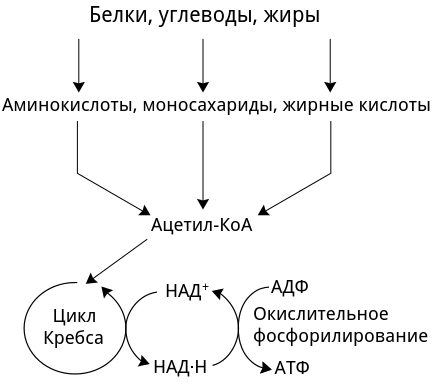
Суммарные реакции аэробного дыхания выглядит следующим образом.
Гликолиз и цикл Кребса: C6H12O6 + 6H2O → 6CO2 + 12H2 + 4АТФ
Дыхательная цепь: 12H2 + 6O2 → 12H2O + 34АТФ
Таким образом биологическое окисление одной молекулы глюкозы дает 38 молекул АТФ. На самом деле нередко бывает меньше.