Материал: билеты по биологии
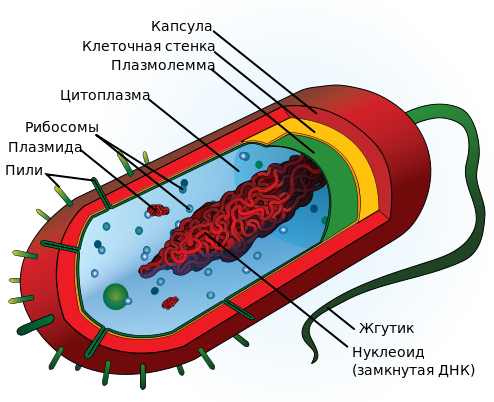
9 Вопрос. Строение прокариотической клетки.
Размеры – от 0,1 мкм до нескольких мкм. Самые мелкие прокариоты – микоплазмы.
1. Клеточная стенка состоит из высокополимерного вещества - муреина (до 90% у грамположительных и10% у грамотрицательных. Цепи полисахаридов, сшитые короткими пептидами).
2. Под ней – цитоплазматическая мембрана.
3. Цитоплазма (греч.cytos– клетка,plasma- образование).
4. Хромосома– двухспиральная кольцевая молекула ДНК длиной около 1мм (E.coli), которая уложена в видепетельза счет образования комплексов с белками. Средняя длина одной петли около 40 тыс. п. н. Весь наследственный материал бактериальной клетки в виде компактной электроноплотной массы расположен в её центре и называется нуклеоидом. Степень компактизации составляет примерно 103.
5. Прямо в цитоплазме расположены рибосомы (осуществляют синтез белков), их от 5 до 50 тыс. в 1 бактериальной клетке.
6. Мезосома– плотно упакованные складки цитоплазматической мембраны. Являются органом дыхания бактерий.
7. Включения (непостоянные структуры) – гранулы резервных питательных веществ (гликоген, липиды и др.) или продуктов обмена веществ (белки, пигменты).
8. Капсула – расположена поверх клеточной стенки, есть у некоторых видов бактерий.
9. Жгутики– орган движения, не покрыты цитоплазматической мембраной.
10. У сине-зеленых водорослей имеются пигменты– хлорофилл, фикоцианин. Расположены на внутренних мембранах.
Бактерии размножаются делением надвое. Закладывается поперечная перегородка (растет снаружи - внутрь), затем дочерние клетки расходятся или остаются связанными в нити, цепочки, пакеты и т.д.
Характерно спорообразование–
отшнуровка части цитоплазмы, в которой
остается хромосома, затем эта часть
покрывается клеточной стенкой.
11 Вопрос. Поверхностный аппарат клетки.
12 Вопрос. Состав и строение цитоплазматической мембраны. Транспорт веществ в клетку.
Клеточная мембрана также называется плазматической (или цитоплазматической) мембраной и плазмалеммой. Данная структура не только отделяет внутреннее содержимое клетки от внешней среды, но также входит с состав большинства клеточных органелл и ядра, в свою очередь отделяя их от гиалоплазмы.
Строение клеточной мембраны
В основе строения клеточной (биологической) мембраны лежит двойной слой липидов (жиров). Формирование такого слоя связано с особенностями их молекул. Липиды не растворяются в воде, а по-своему в ней конденсируются. Одна часть отдельно взятой молекулы липида представляет собой полярную головку (она притягивается водой, т. е. гидрофильна), а другая — пару длинных неполярных хвостов (эта часть молекулы отталкивается от воды, т. е. гидрофобна). Такое строение молекул заставляет их «прятать» хвосты от воды и поворачивать к воде свои полярные головки.
В результате образуется двойной липидный слой, в котором неполярные хвосты находятся внутри (обращены друг к другу), а полярные головки обращены наружу (к внешней среде и цитоплазме). Поверхность такой мембраны гидрофильна, а внутри она гидрофобна.
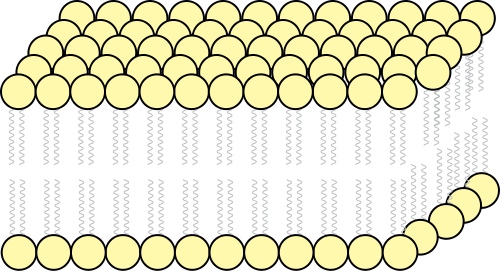
В клеточных мембранах среди липидов преобладают фосфолипиды (относятся к сложным липидам). Их головки содержат остаток фосфорной кислоты. Кроме фосфолипидов есть гликолипиды (липиды + углеводы) и холестерол (относится к стеролам). Последний придает мембране жесткость, размещаясь в ее толще между хвостами остальных липидов (холестерол полностью гидрофобный).
За счет электростатического взаимодействия, к заряженным головкам липидов присоединяются некоторые молекулы белков, которые становятся поверхностными мембранными белками. Другие белки взаимодействуют с неполярными хвостами, частично погружаются в двойной слой или пронизывают его насквозь.
Таким образом, клеточная мембрана состоит из двойного слоя липидов, поверхностных (периферических), погруженных (полуинтегральных) и пронизывающих (интегральных) белков. Кроме того, некоторые белки и липиды с внешней стороны мембраны связаны с углеводными цепями.
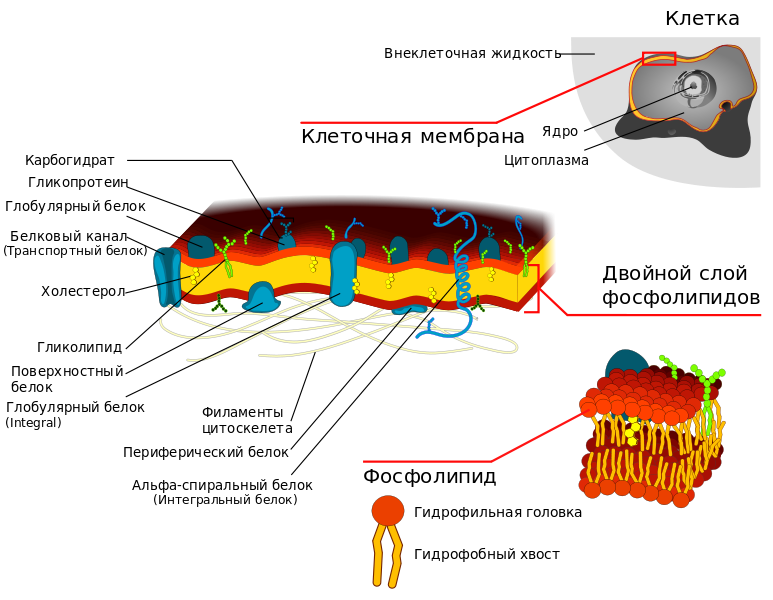
Жидкостно-мозаичная модель строения мембраны
Толщина мембран у разных клеток составляет около 8 нм. Мембраны (даже разные стороны одной) отличаются между собой по процентному соотношению различных видов липидов, белков, ферментативной активности и др. Какие-то мембраны более жидкие и более проницаемые, другие более плотные.
Разрывы клеточной мембраны легко сливаются из-за физико-химических особенностей липидного бислоя. В плоскости мембраны липиды и белки (если только они не закреплены цитоскелетом) перемещаются.
Функции клеточной мембраны
Большинство погруженных в клеточную мембрану белков выполняют ферментативную функцию (являются ферментами). Часто (особенно в мембранах органоидов клетки) ферменты располагаются в определенной последовательности так, что продукты реакции, катализируемые одним ферментом, переходят ко второму, затем третьему и т. д. Образуется конвейер, который стабилизируют поверхностные белки, т. к. не дают ферментам плавать вдоль липидного бислоя.
Клеточная мембрана выполняет отграничивающую (барьерную) от окружающей среды и в то же время транспортную функции. Можно сказать, это ее самое главное назначение. Цитоплазматическая мембрана, обладая прочностью и избирательной проницаемостью, поддерживает постоянство внутреннего состава клетки (ее гомеостаз и целостность).
При этом транспорт веществ происходит различными способами. Транспорт по градиенту концентрации предполагает передвижение веществ из области с их большей концентрацией в область с меньшей (диффузия). Так, например, диффундируют газы (CO2, O2).
Бывает также транспорт против градиента концентрации, но с затратой энергии.
2. Кариоплазма представляет собой коллоидный раствор, содержащий белки, углеводы, соли, другие органические и неорганические вещества. В кариоплазме содержатся все нуклеиновые кислоты: практически весь запас ДНК, информационные, транспортные и рибосомальные РНК.
3. Ядрышко – сферическое образование, содержит различные белки, нуклеопротеиды, липопротеиды, фосфопротеиды. Функция ядрышек – синтез зародышей рибосом.
4. Хроматин (хромосомы). В стационарном состоянии (время между делениями) ДНК равномерно распределены в кариоплазме в виде хроматина. При делении хроматин преобразуется в хромосомы.
Функции ядра: в ядре сосредоточена информация о наследственных признаках организма (информативная функция); хромосомы передают признаки организма от родителей к потомкам (функция наследования); ядро согласует и регулирует процессы в клетке (функция регуляции).
Транспорт бывает пассивным и облегченным (когда ему помогает какой-нибудь переносчик). Пассивная диффузия через клеточную мембрану возможна для жирорастворимых веществ.
Есть особые белки, делающие мембраны проницаемыми для сахаров и других водорастворимых веществ. Такие переносчики соединяются с транспортируемыми молекулами и протаскивают их через мембрану. Так переносится глюкоза внутрь эритроцитов.
Пронизывающие белки, объединяясь, могут образовывать пору для перемещения некоторых веществ через мембрану. Такие переносчики не перемещаются, а образуют в мембране канал и работают аналогично ферментам, связывая определенное вещество. Перенос осуществляется благодаря изменению конформации белка, благодаря чему в мембране образуются каналы. Пример — натрий-калиевый насос.
Транспортная функция клеточной мембраны эукариот также реализуется за счет эндоцитоза (и экзоцитоза). Благодаря этим механизмам в клетку (и из нее) попадают крупные молекулы биополимеров, даже целые клетки. Эндо- и экзоцитоз характерны не для всех клеток эукариот (у прокариот его вообще нет). Так эндоцитоз наблюдается у простейших и низших беспозвоночны; у млекопитающих лейкоциты и макрофаги поглощают вредные вещества и бактерии, т. е. эндоцитоз выполняет защитную функцию для организма.
Эндоцитоз делится на фагоцитоз (цитоплазма обволакивает крупные частицы) и пиноцитоз (захват капелек жидкости с растворенными в ней веществами). Механизм этих процессов приблизительно одинаков. Поглощаемые вещества на поверхности клеток окружаются мембраной. Образуется пузырек (фагоцитарный или пиноцитарный), который затем перемещается внутрь клетки.
Экзоцитоз — это выведение цитоплазматической мембраной веществ из клетки (гормонов, полисахаридов, белков, жиров и др.). Данные вещества заключаются в мембранные пузырьки, которые подходят к клеточной мембране. Обе мембраны сливаются и содержимое оказывается за пределами клетки.
Цитоплазматическая мембрана выполняет рецепторную функцию. Для этого на ее внешней стороне располагаются структуры, способные распознавать химический или физический раздражитель. Часть пронизывающих плазмалемму белков с наружней стороны соединены с полисахаридными цепочками (образуя гликопротеиды). Это своеобразные молекулярные рецепторы, улавливающие гормоны. Когда конкретный гормон связывается со своим рецептором, то изменяет его структуру. Это в свою очередь запускает механизм клеточного ответа. При этом могут открываться каналы, и в клетку могут начать поступать определенные вещества или выводиться из нее.
Рецепторная функция клеточных мембран хорошо изучена на основе действия гормона инсулина. При связывании инсулина с его рецептором-гликопротеидом происходит активация каталитической внутриклеточной части этого белка (фермента аденилатциклазы). Фермент синтезирует из АТФ циклическую АМФ. Уже она активирует или подавляет различные ферменты клеточного метаболизма.
Рецепторная функция цитоплазматической мембраны также включает распознавание соседних однотипных клеток. Такие клетки прикрепляются друг к другу различными межклеточными контактами.
В тканях с помощью межклеточных контактов клетки могут обмениваться между собой информацией с помощью специально синтезируемых низкомолекулярных веществ. Одним из примеров подобного взаимодействия является контактное торможение, когда клетки прекращают рост, получив информацию, что свободное пространство занято.
Межклеточные контакты бывают простыми (мембраны разных клеток прилегают друг к другу), замковыми (впячивания мембраны одной клетки в другую), десмосомы (когда мембраны соединены пучками поперечных волокон, проникающих в цитоплазму). Кроме того, есть вариант межклеточных контактов за счет медиаторов (посредников) — синапсы. В них сигнал передается не только химическим, но и электрическим способом. Синапсами передаются сигналы между нервными клетками, а также от нервных к мышечным.
13 Вопрос. Синтез и постсинтетическая модификация белков в эукариотической клетке.
14 Вопрос. Элементы цитоскелета: состав, строение, функции.
Цитоскелет - совокупность нитевидных белковых структур – микротрубочек и микрофиламентов, составляющих опорно-двигательную систему клетки.
Цитоскелетом обладают только эукариотические клетки, в клетках прокариот его нет, что является важным различием этих двух типов клеток. Цитоскелет придаёт клетке определённую форму даже при отсутствии жёсткой клеточной стенки. Он организует движение органоидов в цитоплазме (т. н. течение протоплазмы), лежащее в основе амёбоидного движения. Цитоскелет легко перестраивается, обеспечивая в случае необходимости изменение формы клеток. Способность клеток изменять форму обусловливает перемещение клеточных пластов на ранних стадиях зародышевого развития. При делении клетки (митозе) цитоскелет «разбирается» (диссоциирует), а в дочерних клетках вновь происходит его самосборка.
Цитоскелет выполняет три главные функции:
1. Служит клетке механическим каркасом, который придает клетке типическую форму и обеспечивает связь между мембраной и органеллами. Каркас представляет собой динамичную структуру, которая постоянно обновляется по мере изменения внешних условий и состояния клетки.
2. Действует как «мотор» для клеточного движения. Двигательные (сократительные) белки содержатся не только в мышечных клетках, но и в других тканях. Компоненты цитоскелета определяют направление и координируют движение, деление, изменение формы клеток в процессе роста, перемещение органелл, движение цитоплазмы.
3. Служит в качестве «рельсов» для транспорта органелл и других крупных комплексов внутри клетки.
15 Вопрос. Вакуолярная система внутриклеточного транспорта.
Вакуолярная система, состоящая из одномембранных органелл (эндоплазматический ретикулум, аппарат Гольджи, лизосомы, эндосомы, секреторные вакуоли) выполняет функции синтеза, перестройки (модификации), сортировки и выведения (экспорта) из клетки биополимеров, а также функции синтеза мембран этой системы и плазматической мембраны.
Синтез основной массы клеточных белков протекает на полисомах в цитозоле после которого они направляются строго по своим внутриклеточным адресам, так как разные по назначению белки имеют «сигнальные» последовательности аминокислот или метки, по которым разные белки распределяются в клетке. Например, ядерные белки имеют NLS-сигнальную последовательность, белки митохондрий имеют свою и т.д. Общим для всех белков является синтез в цитозоле, и затем посттрансляционный перенос по адресам с помощью внутриклеточных белковых комплексов.
Белки на экспорт и белки мембран синтезируются на рибосомах, расположенных на мембранах эндоплазматического ретикулума и попадают внутрь вакуолей котрансляционнои затем уже внутри вакуолей, или в составе мембран вакуолей транспортируются внутри клетки.
Общая схема функционирования вакуолярной системы.
Отличительной чертой вакуолярной системы является то, что синтезированные полимеры и продукты их превращений отделены от собственно цитоплазмы, от цитозоля, и становятся изолированными от цитозольных ферментов. Такое разобщение очень важно для одновременного протекания в клетке многих синтетических процессов.
Для всей вакуолярной системы характерна кооперативность ее функционирования, взаимосвязь и последовательность этапов образования, перестройки, транспорта и экспорта синтезированных белков. Общая схема функционирования вакуолярной системы заключается в следующем.
Гранулярный эндоплазматический ретикулум обеспечивает котрансляционный синтез растворимых внутривакуолярных белков (секреторные белки, гидролазы лизосом и др.) и синтез нерастворимых мембранных белков вакуолярной системы, первичную модификацию растворимых и нерастворимых (мембранных) белков, их соединение с олигосахаридами и образование гликопротеидов, синтез мембранных липидов и их встраивание в мембрану.
Вакуоли, содержащие новообразованные продукты ЭР отделяются от него и переходят в цис-зону аппарата Гольджи (ЭР-АГ комплекс).
В цис-зоне аппарата Гольджи происходит вторичная модификация гликопротеидов, синтез полисахаридов (гемицеллюлоза растений) и гексозаминогликанов. Затем в промежуточной зоне аппарата Гольджи: продолжается дополнительная модификация гликопротеидов, трансгликозилирование.