Материал: Ответы на физиологию
Влагалище — vagina — широкая трубка со всеми слоями, характерными для трубчатого органа, ее наружная оболочка — адвен-тиция. На вентральной стенке каудальной части влагалища открывается отверстие мочеиспускательного канала, которое является границей между влагалищем и мочеполовым преддверием. В отличие от влагалища преддверие имеет дорсальные и вентральные преддверные железы и остатки кавернозных тел, заканчивается оно наружными половыми органами — половыми губами, в вентральном углу половой щели расположен клитор.
В настоящее время накоплены многочисленные экспериментальные и клинические данные о регуляции функции яичников, физиологии и патологии роста и созревания фолликулов, овуляции и формировании желтого тела (см. Гонадотропные гормоны, Желтое тело, Овуляция). Ведущая роль в стимуляции и запуске всей сложной системы регуляции функции яичников отводится половым гормонам, особенно эстрогенам. Гипоталамус и гипофиз содержат рецепторы к половым гормонам. Экспериментально установлена преимущественная локализация рецепторов к эстрогенам в преоптической и аркуатной областях гипоталамуса, что подтверждает непосредственное участие эстро-генрецепторной системы в регуляции секреции гонадотропинов гипофизом. Отсутствие рецепторов в ткани органов-мишеней исключает возможность реализации биологического эффекта соответствующих гормонов (на тканевом уровне), что наблюдается при некоторых эндокринных заболеваниях.
В растущих фолликулах яичников под влиянием ФСГ и эстрадиола увеличивается способность клеток зернистого слоя фолликулов связывать гонадотропины за счет увеличения числа рецепторов сначала к ФСГ, затем к ЛГипролактину. Это подтверждается при обнаружении гонадотропинов в фолликулярной жидкости, причем концентрация ФСГ возрастает в поздней фолликулиновой фазе, а концентрация ЛГ и пролактина — в лютеиновой фазе менструального цикла (см. Менструальный цикл). Количество рецепторов к гонадотропинам в оболочках фолликула определяет так называемые доминантные фолликулы для овуляции. Таким образом, секреция гормонов яичников находится под контролем гипоталамо-гипофизарной системы (см. Нейрогуморальная регуляция), под влиянием которой происходят циклические изменения как в самих яичниках, так и в органах-мишенях (матке, влагалище, молочных железах). Половые гормоны оказывают сложное биологическое действие на организм в целом, участвуя в поддержании гомеостаза (см.). Андрогены и эстрогены принимают участие в регуляции белкового обмена (анаболическое действие), остеогенеза; прогестерон снижает тонус матки, способствует секреторной трансформации эндометрия, развитию (совместно с эстрогенами) молочных желез.
78. Где и как осуществляется фолликула- и овогенез формирование желтого тела
Фолликулогенезом называется поступательное развитие фолликулов от стадии примордиальных до преовуляторных (третичных) фолликулов, или граафовых пузырьков. Термином "овариальный фолликул" обозначается клеточно-тканевый комплекс (ово-соматический гистион), состоящий из женской половой клетки и окружающих ее соматических тканей — производных rete ovarii. Фолликулогенез возникает в организме женщины лишь с наступлением периода полового созревания. Этапность фолликулогенеза заключается в развитии примордиального фолликула в первичный, первичного — во вторичный и далее вторичного — в третичный фолликул, или граафов пузырек. В процессе фолликулогенеза половая клетка претерпевает стадию большого роста, и на финальных стадиях фолликулогенеза возобновляет мейоз. Развитие примордиальных фолликулов в первичные характеризуется следующими признаками: а) возрастают размеры овоцита в связи с накоплением вителлина и развитием органелл; б) фолликулярные клетки, окружающие овоцит, пролиферируют, увеличиваются их число и размеры, они становятся кубическими или призматическими, однослойный эпителий дифференцируется в многослойный. Так образуется многослойная эпителиальная оболочка фолликулов (фолликулярный эпителий, или зернистый слой). Как и в примордиальном фолликуле, овоцит первичного фолликула пребывает в состоянии блока мейоза, несмотря на то, что его рост продолжается и даже активируется. В первичном фолликуле с двухслойным фолликулярным эпителием происходит образование прозрачной зоны овоцита, в состав которой входят кислые и нейтральные гликозаминогликаны. Прозрачную зону пронизывает множество каналов разной величины, в которых проходят цитоплазматические отростки фолликулярных клеток к овоциту, обеспечивающие полноценную трофику половой клетки. В процессе образования первичного фолликула вокруг зернистого слоя располагаются соединительнотканные клетки и создают внешнюю соединительнотканную оболочку фолликула — теку. Формирование теки знаменует становление регионального кровоснабжения и иннервации фолликула. В стадии вторичного фолликула в фолликулярном эпителии активизируются пролиферативные процессы, тека дифференцируется на внутреннюю и наружную части, совершенствуется нейро-трофическое обеспечение, формируется фолликулярная полость, в многослойном фолликулярном эпителии обособляется область, несущая половую клетку, — яйценосный бугорок, или кумулюс. Третичные фолликулы (граафовы пузырьки, преовуляторные фолликулы) характеризуются высшей степенью развития и подготовкой фолликула к овуляции. Фолликул имеет крупные размеры, большую полость, заполненную жидкостью, истонченную стенку. Овоцит 1-го порядка со стороны полости окружен одним-тремя слоями фолликулярных клеток — лучистым венцом, и постепенно отходит от кумулюса. Сосуды теки характеризуются кровенаполнением. В овоците третичного фолликула реинициируется мейоз. Завершается первое и начинается второе — эк-вационное деление мейоза, возникает овоцит 2-го порядка и первое редукционное тельце. Общая продолжительность развития примордиалыгого фолликула до стадии преовуляторного фолликула у человека составляет около 120 суток. В фолликулах, стенка которых состоит из фолликулярного эпителия и теки, осуществляется синтез половых гормонов. Образующийся эстрадиол частично транспортируется в кровь, частично выделяется в полость фолликула. От внутрифолли-кулярной концентрации эстрадиола во многом зависит судьба развивающегося фолликула — чем выше эта концентрация, тем фолликул имеет больше возможностей продолжить развитие и достигнуть стадии зрелого граафова пузырька. Фолликулы с низким региональным уровнем эстрадиола (фолликулы с андрогенным профилем), как правило, подвергаются атрезии (погибают). Оптимальные условия для развития женских половых клеток создает гемато-фолликулярный барьер (гистион), в который входят: эндотелиоциты гемокапилля-ров теки, базальная мембрана эндотелия, интерстициальные элементы теки, базаль-ная мембрана фолликулярного эпителия, фолликулярные клетки купулы и лучистого венца, прозрачная зона. Овуляция представляет собой гормонально зависимый процесс разрыва стенки третичного (преовуляторного) фолликула и выхода женской половой клетки в маточную трубу. В момент овуляции овоцит 2-го порядка находится на стадии метафазы второго деления мейоза. Если овоцит 2-го порядка не оплодотворяется, он погибает, так и не закончив мейоз. Завершение мейоза возможно лишь при условии оплодотворения (под влиянием активирующего начала мужской половой клетки).
=
79. Что такое оплодотворение и где оно происходит.
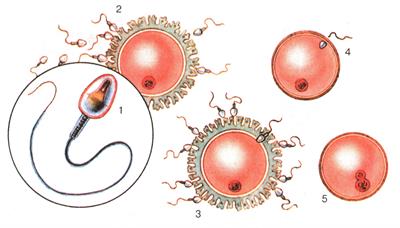
Оплодотворение — это процесс слияния мужских и женских половых клеток, в результате которого образуется зигота.
Из зиготы развивается зародыш, который даёт начало новому организму.
У животных процесс оплодотворения начинается с проникновения сперматозоида в яйцеклетку.
При соприкосновении головки сперматозоида с оболочкой яйцеклетки содержащиеся в акросоме ферменты выделяются на поверхность оболочки. Под их действием оболочка яйцеклетки в месте контакта растворяется. Содержимое сперматозоида проникает внутрь яйцеклетки.
Оболочка яйцеклетки становится непроницаемой для остальных сперматозоидов, в ней происходит слияние двух ядер. В результате формируется диплоидное ядро зиготы.
В оплодотворённой яйцеклетке происходит удвоение ДНК, и она готовится к делению.
 У
животных существует два способа оплодотворения:
наружный и внутренний.
При наружном оплодотворении самка вымётывает яйцеклетки (икру), а самец — сперму — во внешнюю среду. Там и происходит оплодотворение. Такой способ характерен для водных обитателей (рыб, земноводных).
При внутреннем оплодотворении слияние гамет происходит в половых путях самки. Такой способ характерен для наземных и некоторых водных обитателей (червей, насекомых, рептилий, птиц, млекопитающих).
Биологическое значение оплодотворения состоит в том, что при слиянии гамет восстанавливается диплоидный набор хромосом, а новый организм приобретает генетическую информацию и признаки обоих родителей.
Партеногенез
Партеногенез — разновидность полового размножения, при котором взрослая особь развивается из неоплодотворённой яйцеклетки.
Партеногенез встречается у низших ракообразных (дафний), насекомых (пчёл, тлей), у некоторых птиц (индюшек) и чередуется с половым размножением.
Из неоплодотворённых яйцеклеток с гаплоидным набором хромосом развивается новый организм. При первом делении митоза после удвоения ДНК хромосомы не расходятся, и диплоидный набор восстанавливается.
Партеногенез может идти как при благоприятных условиях, так и при неблагоприятных.
Пример:
у тлей, дафний летом развиваются самки, а осенью из неоплодотворённых яиц развиваются самцы. У пчёл из неоплодотворённых яиц развиваются всегда самцы — трутни, а из оплодотворённых — самки (матки) и рабочие пчёлы.
80.Что такое беременность и как осуществляется подержание беременности?
Беременность у животных — физиологическое состояние самки, наступающее в момент оплодотворения и заканчивающееся рождением плода. Беременность у млекопитающих (кроме яйцекладущих), живородящих рыб (акулы, скаты и др.) и пресмыкающихся (гадюка, живородящая ящерица и др.) существенно отличается.
В основном подерживают беременность , придерживаясь 3 пунктам:
Не перекармливают
Благополучное внешние факторы
Правильный режим питания
81.Что понимают под лактацией?
Лактация – процесс образования, накопления и выведения молока из молочных желёз.
Лактогенез – наступление секреции молока в заключительный период беременности и её развитие в первые дни после родов.
Лактопоэз – процесс образование молока в ходе установившейся лактации.
Интенсивное функционирование молочных желёз начинается сразу после отёла. Наибольшего развития достигают альвеолы и протоки, но и в течение последующих лет отмечают рост и развитие вымени. Считают, что рост молочной железы в основном происходит во второй половине сухостойного периода, когда животное не доят и оно готовится к новой лактации.
После десяти месяцев лактации удои постепенно уменьшаются и коров прекращают доить до нового отёла. В снижении уровня лактации важную роль играет гормональная перестройка организма вследствие новой беременности. Уже со 2-4-го месяца беременности секреторная функция молочной железы понижается. Окончание лактации свидетельствует о переходе в состояние функционального покоя и наступлении обратного развития (инволюции) молочной железы. В этот период альвеолы вымени уменьшаются в размерах, часть мелких протоков атрофируется, а железистая ткань местами заменяется жировой. Однако это временное состояние прекращается в связи с новыми половыми циклами. При новой беременности и родах цикл развития молочной железы повторяется.