Материал: Ответы на физиологию
 Половая
система самца
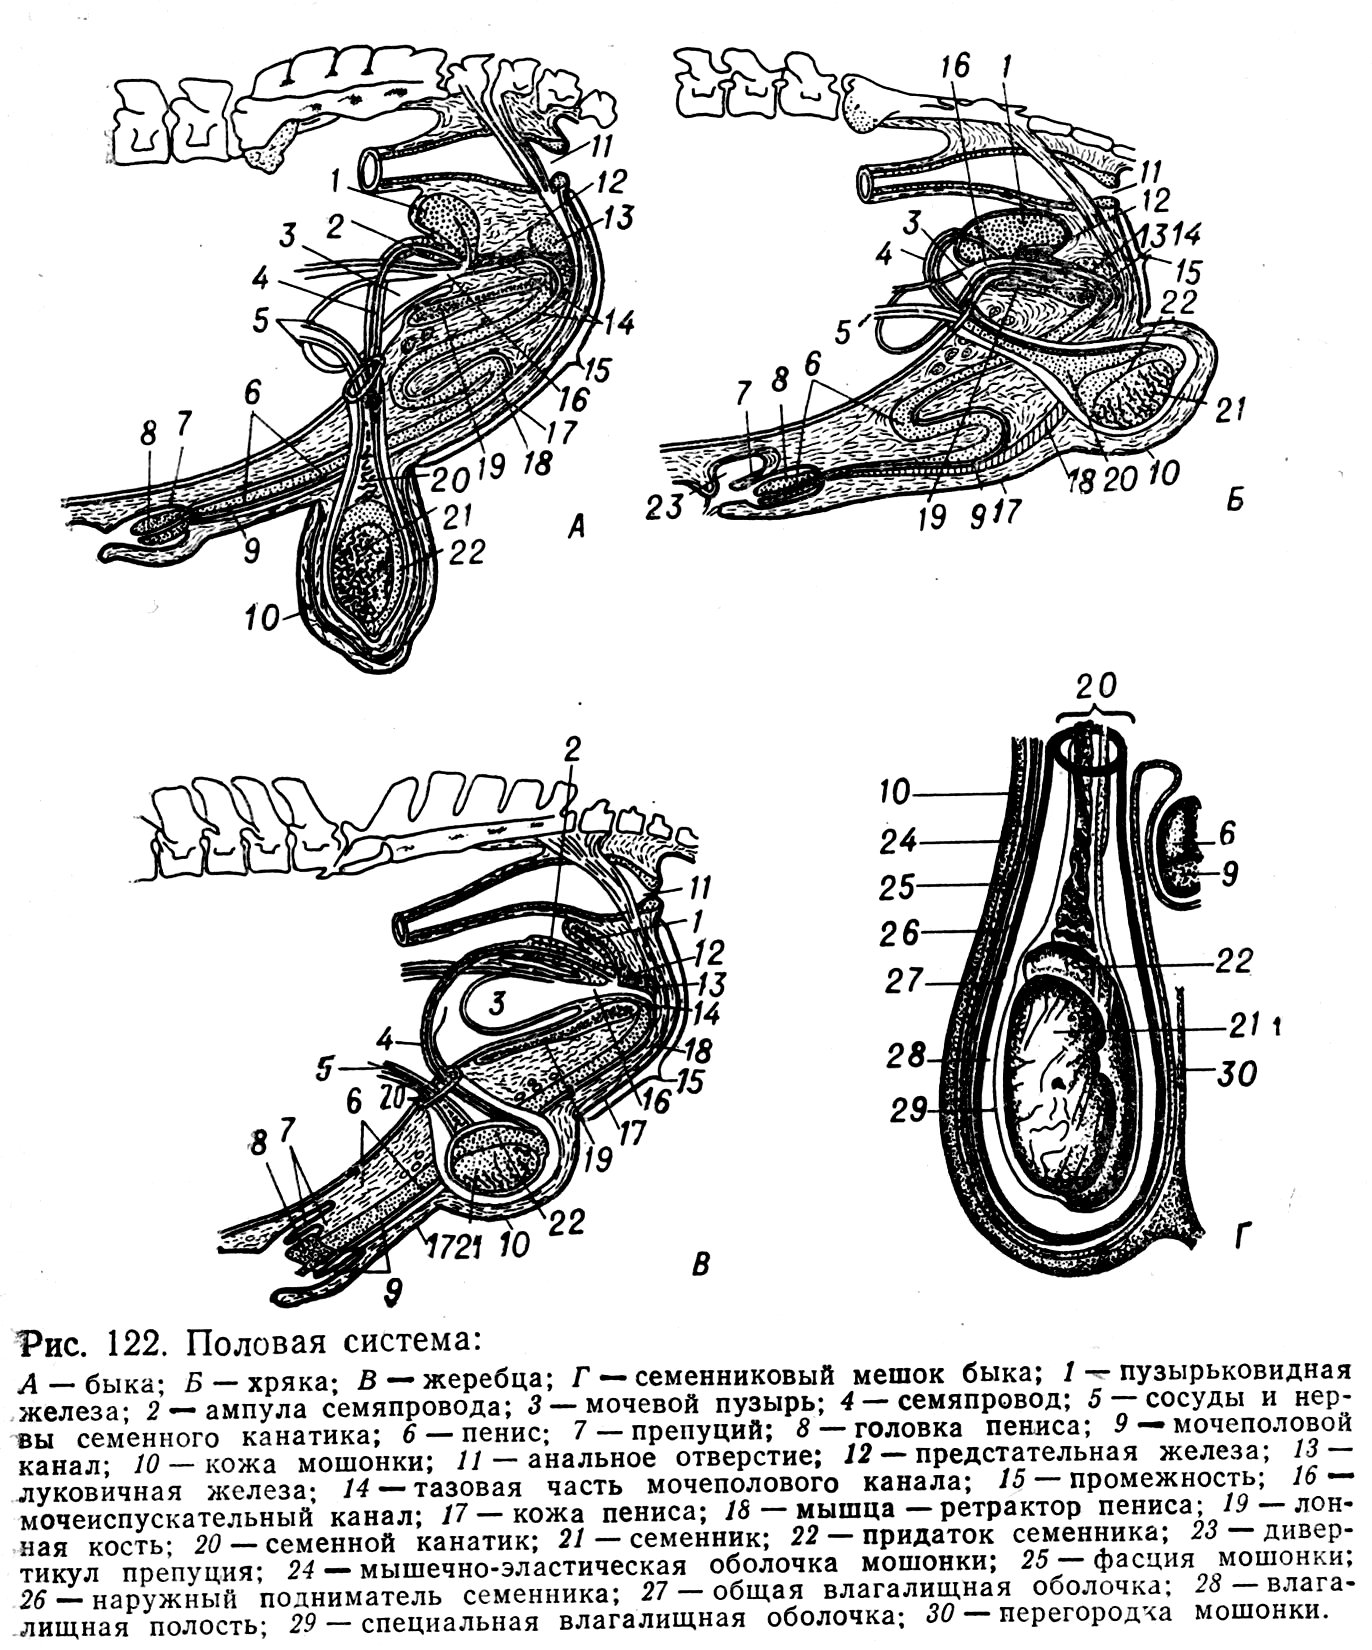
Мошонка (см. рис. 17)- scrotum - состоит из кожи (10) и мышечно-эластической оболочки (24), сросшихся между собой. Внутренний слой мошонки - мышечно-эластическая оболочка образована за счет фасции (25), подкожного слоя и гладкой мышечной ткани. Она образует перегородку мошонки (30), разделяющую полость мошонки на 2 камеры. В каждой камере заключено по одному семеннику с придатком. Кожа мошонки розоватая или пигментированная, содержит потовые и сальные железы и покрыта редкими короткими волосами. Расположена мошонка у быка, барана, жеребца между бедрами, у хряка — каудальнее бедер. Расстояние между анусом и мошонкой называется промежностью. У хряка промежность короткая, у быка — наиболее длинная.
Семенной канатик (см. рис. 17) - funiculus spermaticus (20) - это складка брыжейки семенника в виде сплющенного конуса, куда заключены сосуды, нервы (5), мышца — внутренний подниматель семенника и семяпровод (4). Семенной канатик отходит от придатка семенника и через паховый канал проникает в брюшную полость, где его составные части расходятся в разные стороны.
Семяпровод (см. рис. 17) - ductus deferens (4) - отходит от хвоста придатка, идет в составе семенного канатика. Достигнув брюшной полости, направляется дорсокаудально в тазовую полость, проходит дорсально от мочевого пузыря и впадает в мочеиспускательный канал, который с этого места называется мочеполовым. Семяпровод - узкий парный трубкообразный орган. Его стенка состоит из слизистой, мышечной и серозной оболочек. Спермии передвигаются по семяпроводу благодаря сокращению его мышечной оболочки. Конечный участок семяпровода у быка, барана и жеребца утолщен. Это железистая часть или ампула семяпровода (2). В ее стенке развиваются железы, секрет которых, добавляясь к семени, питает спермии.
Мочеполовой канал (см. рис. 17) - canalis urogenitalis (9)- или мужская уретра служит для выведения мочи и спермы. Начинается с впадения семяпроводов в мочеиспускательный канал и заканчивается на головке полового члена. В нем различают тазовую (14) и половочленную (9) части. Тазовая часть лежит на дне тазовой полости, каудально доходит до седалищной дуги, перегибается через нее, переходит на вентральную поверхность полового члена - становится половочленной частью мочеполового канала. В тазовую часть мочеполового канала открываются добавочные половые железы. Их секрет вместе со спермиями составляет сперму. Половочленная часть проходит в вентральной части полового члена. Конец мочеполового канала у быка и хряка не выходит за пределы головки полового члена. У барана образует мочеполовой отросток, выходящий за пределы головки. Стенка мочеполового канала образована слизистой оболочкой, кавернозным телом и мышечной оболочкой. Слизистая оболочка покрытамногослойным эпителием. Кавернозное тело представляет собой соединительнотканную оболочку с большим количеством коллагеновых и эластических волокон. В этом слое заложено густое венозное сплетение с расширениями — лакунами. При их наполнении кровью расширяется просвет мочеполового канала.
Добавочные половые железы (см. рис. 17). Пузырьковидная железа - glandula vesicularis (1) - парная, сложная, трубчато-альвеолярная. Расположена дорсальнее мочевого пузыря. Главный выводной проток железы открывается вместе с семяпроводом в начало мочеполового канала. Железа вырабатывает густой клейкий секрет. Он служит для питания спермиев, а также может образовывать влагалищную пробку в половых путях самки, препятствующую вытеканию спермы.
Предстательная железа - glandula prostate (12)- состоит из застенной и пристенной частей. Застенная часть — тело железы длиной 2—4 см расположено поперек шейки мочевого пузыря и мочеполового канала. У барана тело железы не развито. У жеребца с двух сторон от тела (перешейка) отходят крупные боковые доли. Пристенная, или рассеянная, часть залегает в стенке тазовой части мочеполового канала. Железа сложная, альвеолярно-трубчатая, протоки ее открываются в мочеполовой канал. Ее секрет поддерживает двигательную активность спермиев и, по некоторым данным, нейтрализует, кислую среду влагалища.
76.Органы размножения самок
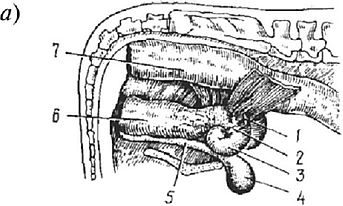
Органы размножения самок состоят из парных яичников, где созревает яйцеклетка; парных яйцепроводов, в которых происходит оплодотворение яйцеклетки; матки, где развивается плод; выводящих, или родовых, путей — влагалища, мочеполового преддверия и наружных половых органов (рис. 7.1).
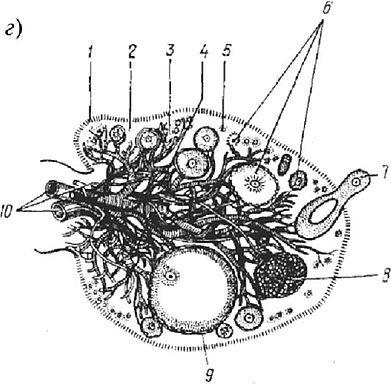
Яичник — ovarium — железистый орган бобовидной формы, с поверхности покрыт зачатковым эпителием. Под зачатковым эпителием располагается фолликулярная зона с множеством фолликулов (пузырьков), в которых созревают яйцеклетки. Крупные фолликулы с созревшей яйцеклеткой подходят к поверхности яичника и разрывают ее. Созревшая яйцеклетка выводится в брюшную полость и попадает в воронку яйцепровода, а затем ворсинками мерцательного эпителия перемещается в матку. Если яйцеклетка оплодотворена, она задерживается в матке и продолжает развиваться, а на яичнике, там, где яйцеклетка вышла из фолликула, развивается желтое тело, функционирующее как железа внутренней секреции. В центре яичника находится мозговая сосудистая зона. У лошади яичник покрыт серозной оболочкой и только в области овуляционной ямки, где произошла овуляция, ее нет. Это место окружено бахромой воронки яйцевода. У свиньи яичник имеет вид тутовой ягоды, бугристый, что объясняется многоплодностью этих животных.
Яйцепроводы— salpinx — тонкие извитые трубочки, в которых яйцеклетка оплодотворяется и начинает делиться, проходя по ним в матку. Около яичника воронкообразное расширение яйцепровода окружено бахромой. Противоположный конец яйцепровода постепенно переходит в рог матки (у лошади впадает в него). Слизистая оболочка воронки покрыта цилиндрическим мерцательным эпителием. В стенках яйцепровода имеются кольцевые и продольные пучки мышечных клеток, которые участвуют в продвижении яйцеклетки в матку.
Р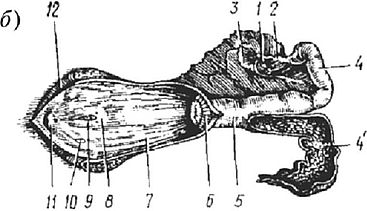 ис.
7.1. Половые
органы самок:
5
 А

а — коровы (невскрытые): 1 — яичник; 2 —яйцепровод; 3 — рог матки; 4 — мочевой пузырь; 5 — мочеиспускательный канал; 6 — влагалище; 7 — прямая кишка;
б — коровы (вскрытые): 1 — яичник; 2 — яйцепровод; 3 — воронка яйцепровода; 4 — рог матки; 4' — слизистая оболочка матки; 5 — тело матки; 6 — влагалищная часть шейки матки; 7 — влагалище; 8 — поперечная складка слизистой оболочки (у молодых животных); 9 — отверстие мочеиспускательного канала; 10 — железы; 11 — клитор; 12 — срамные губы;
в — свиньи: 1 — яичник; 2 — яйцепровод; 3 — брыжейка матки (широкая маточная связка) с проходящими в толще ее артериями; 4 — рога матки; 5 — тело матки; 6 — карункулы; 7 — влагалище
(вскрыто); 8 — складки слизистой оболочки; 9 — отверстие мочеиспускательного канала; 10 — преддверие влагалища (мочеполовой синус); 11 — клитор; 12 — половые губы; 13 — отверстие вентральных и дорсальных преддверных желез;
г — схема яичника коровы: 1 — эпителий; 2 — белочная оболочка; 3 — корковое вещество; 4 — мозговое вещество; 5 — первичный фолликул; 6 — растущие фолликулы; 7 — овуляция; 8 — желтое тело; 9 — пузырчатый яичниковый фолликул; 10 — кровеносные сосуды и нервы
Матка — uterus — полый мышечный орган, расположенный между прямой кишкой и мочевым пузырем. На матке различают рога, в которых развивается плод, тело и шейку. Последняя впадает во влагалище (у рогатого скота и лошадей). У рогатого скота, лошади, свиньи матка двурогая. У рогатого скота рога матки изогнуты спирально, у лошади закругленные тупые, у свиней длинные, напоминают петли кишечника. Стенки матки пронизаны густой сетью кровеносных сосудов. Через них осуществляется питание плода и выведение продуктов обмена веществ в организм матери, а затем во внешнюю среду. Слизистая оболочка матки — эндометрий — имеет железы у крупного рогатого скота и образует карункулы. Мышечная оболочка — миометрий — состоит из гладкой мышечной ткани. Снаружи матка покрыта серозной оболочкой — периметрием.
Луковичная железа - glandula bulbosa (13) - парная, сложная, альвеолярно-трубчатая, расположена на конце тазовой части мочеполового канала. Прикрыта луковично-кавернозной мышцей. Секрет ее предохраняет спермии от остатков мочи в мочеполовом канале.
Половой член — penis (см. рис. 17)—орган совокупления (6). В нем различают корень, тело и головку (8). На всем протяжении он построен из плотной соединительной ткани и кавернозных тел и содержит мочеполовой канал. Плотная соединительная ткань формирует белочную оболочку, от которой отходят перегородки - трабекулы. В трабекулах много коллагеновых и эластических волокон, гладкомышечных клеток. Между трабекулами образуются ходы и расширения, выстланные эндотелием, - каверны. Обильный приток крови к кавернам во время полового возбуждения приводит к увеличению и напряжению полового члена - эрекции. В дорсальной стороне пениса проходят сосуды. На вентральной его стороне имеется желобок, в котором залегает мочеполовой канал.
У быка половой член длинный (до 100 см) и сравнительно тонкий (2,5 - 3 см). Корень пениса начинается ножками от седалищных бугров, прикрыт луковично-кавернозными мышцами. Объединяясь, ножки переходят в длинное тело с S-образным изгибом. Кавернозные тела в пенисе быка развиты слабо, поэтому при эрекции не происходит заметного утолщения пениса. Удлиняется он за счет распрямления S-образного изгиба. Возвращается в исходное положение в результате сокращения мышцы ретрактора пениса (18), которая закрепляется одним концом на крестцовых и хвостовых позвонках, другим - на S-образном изгибе пениса. Перед головкой пенис сужается - формируется шейка головки. На головке пениса быка, барана, козла различают колпачок головки. У быка мочеполовой канал не выходит за пределы колпачка головки. Конечный его участок проходит в спиралеобразном желобе с левой стороны головки. У барана и козла мочеполовой канал выходит на 2 - 3 см дальше головки в виде узкого (2 - 3 мм), у барана изогнутого, у козла прямого отростка. У хряка половой член по строению сходен с пенисом быка, но меньших размеров (45 - 50 см) и головка спиралевидно закручена. У жеребца половой член не имеет S-образного изгиба, тело уплощено с боков, хорошо развиты кавернозные тела в теле и головке. Головка широкая с утолщением на конце - венчиком головки. Мочеполовой канал не выступает за пределы головки - открывается в ямке головки. При эрекции пенис сильно увеличивается в объеме и длине, диаметр венчика головки достигает 12 - 15см.
Препуций – praeputium (см. рис. 14) , или крайняя плоть (7), - складка кожи, скрывающая передний конец пениса. В препуции самцов рогатого скота и свиньи различают 2 листка - наружный и внутренний. Оба они имеют такое же строение, как и кожа. Внутренний листок переходит в слизистую оболочку мочеполового канала, содержит трубчатые препуциальные железы и лимфатические узелки. Между листками препуция имеется щелевидное пространство. Наружное отверстие препуция расположено немного дальше пупка и окружено длинными волосами. Препуций хряка в дорсальной стенке имеет мешковидное выпячивание – дивертикул (23). Препуций жеребца двойной - наружный и внутренний. Каждый из них состоит из двух листков - наружного и внутреннего. При эрекции внутренний препуций расправляется, допуская значительное удлинение пениса.
75.Где и как происходит сперматогене?
Образование спермиев происходит в извитых семенных канальцах. Стенка извитого канальца состоит из двух родов клеток: спермиогенных (дающих спермии) и питающих (клетки Сертоли). Спермиогенные клетки имеют округлую форму и расположены в несколько рядов. Клетки Сертоли имеют ядра треугольной формы, а их цитоплазма вытянута в виде языка пламени и простирается до просвета извитого семенного канальца.
Спермиогенез протекает в 4 стадии: размножения, роста, созревания и формирования. Самые молодые клетки спермио-генного эпителия находятся на базальной мембране извитого канальца и называются сперматогониями. Они отличаются малыми размерами и овальным ядром.
В процессе деления половина сперматогоний А типа переходит в промежуточный тип, а остальные образуют резерв для следующего сперматогенного цикла.
Каждый сперматогоний промежуточного типа в результате четырех последовательных делений дает 16 сперматогоний Б типа; последние преобразуются в сперматоциты 2-го порядка, содержащие гаплоидный (половинный) набор хромосом. Из каждого сперматоцита 2-го порядка образуется два сперматида.
Сперматид – это небольшая клетка округлой формы. Формирование спермиев из сперматид происходит в цитоплаз-менных выростах клеток Сертоли, выполняющих гликогенобра-зующую функцию. В каждой клетке Сертоли одновременно помещается до 8-12 сперматид. Путем сложных превращений из сперматид образуются спермии. Этот процесс протекает следующим образом. Ядро сперматида сдвигается к одному из полюсов, уплотняется и образует головку. Аппарат Гольджи формирует на передней части головки акросому. Цитоплазма вытягивается в противоположном направлении. При этом из центросомы образуются две центриоли (проксимальная и дистальная) и осевые элементы спермия, а из митохондрий – спиральные элементы. Остатки цитоплазмы (в виде цитоплазменной капли) сползают в процессе дозревания спермия.
После завершения формирования спермии при помощи фермента гиалуронидазы растворяют цитоплазменный вырост, отторгаются и поступают в просвет извитого канальца, а затем в прямой каналец, сеть семенника и через спермиовыносящие канальцы – в канал придатка семенника.
При обычных условиях кормления и содержания в семенниках быка и барана за сутки образуется 5-7 млрд, хряка и жеребца – 15-20 млрд спермиев.
Сформировавшиеся спермии продвигаются по канальце-вой системе благодаря давлению массы спермиев и секрета, сокращениям мышц, колебаниям ресничек мерцательного эпите-- 33 -
лия. Продвижению их по головке и телу придатка семенника способствует собственная подвижность спермиев, обусловленная слабощелочной реакцией среды.
При продвижении по каналу придатка семенника спермии проходят дозревание. Сущность этого процесса состоит в том, что спермии обволакиваются вязким секретом эпителиальных клеток, в результате на их поверхности образуется тонкая защитная пленка – липопротеидный покров, а цитоплазменная капля исчезает. С липопротеидным покровом также связано приобретение отрицательного электрического заряда. Это имеет большое значение, так как препятствует столкновению и склеиванию спермиев.
Длительность спермиогенного цикла у быка составляет 54 дня, барана – 49, хряка – 34 дня. Для прохождения канала придатка семенника требуется одна неделя.
Зрелые спермии накапливаются в расширенной (хвостовой) части канала придатка семенника. Здесь сосредотачивается огромное их количество: у быка и барана – 150-200 млрд, хряка и жеребца – 200-300 млрд.
77. Какие виды деятельности осуществляются яичниками.
Различают две тесно взаимосвязанные основные функции яичников: секрецит стероидных гормонов, в том числе эстрогенов (см.) и прогестерона (eta.), обусловливающих появление и формирование вторичных половых признаков, наступление менструации, а также выработку способных к оплодотворению яйцеклеток, обеспечивающих репродуктивную функцию. По данным В. Б. Розена, в процессе онтогенеза нормальное функционирование яичников зависит от полноты дифференцировки яичников, а после рождения ребенка — от интегрирующей деятельности эндокринной системы в целом.
Яичники плода обладают функциональной активностью с первых недель внутриутробного развития. Так, в яичниках 10—12-недельного плода эстрогены обнаруживаются в чрезвычайно малых количествах; на 8— 13-й неделе внутриутробного развития определяются признаки функциональной активности гипоталамо-гипофизарно-яичниковой системы плода, которая в процессе дальнейшего внутриутробного развития претерпевает изменения соответственно гестационному возрасту плода. Таким образом, к моменту рождения плод имеет потенциально способную к координированной деятельности систему гипоталамус — гипофиз—яичники, которая функционирует в это время на ином качественном и количественном уровнях по сравнению с другими возрастными периодами жизни женщины.
Яичники новорожденной девочки, испытывающие влияние материнских эстрогенов, содержат большое количество примордиальных фолликулов, число их в последующем прогрессивно уменьшается; у девочек 8—9 лет в яичниках преобладают первичные фолликулы, в которых образуется небольшое количество эстрогенов. В клетках зернистого слоя этих фолликулов находятся рецепторы фолликулостимулирующего гормона — ФСГ и отсутствуют рецепторы лютеинизирующего гормона — Л Г (см. Рецепторы, клеточные рецепторы).
У девочек до 8—9 лет выявлена корреляция между продукцией ФСГ, ростом фолликулов в яичниках и концентрацией эстрогенов в крови. С возрастом отмечается постепенное увеличение функциональной активности яичников, сопровождающейся повышением секреции эстрогенов, однако физиол. признаки эстрогенизации у девочек препубертатного возраста выражены слабо. По данным Фореста (М. G. Forest, 1979), это связано с недостаточным развитием рецепторов к эстрогенам в органах-мишенях (матка, влагалище, молочные железы). К 8—9 годам возрастает секреция рилизинг-гормонов (РГ), гонадотропинов (ГТ), повышается чувствительность гипофиза к РГ, а яичников — к ГТ. В возрасте 11—12 лет наблюдается увеличение секреции ФСГГ под влиянием которого ускоряется рост фолликулов до стадии пузырчатых, секретирую-щих эстрогены в количестве, достаточном для развития матки и вторичных половых признаков, а также формирования тела по женскому типу. Секреция эстрогенов к 12 годам возрастает в 10—15 раз, причем, если у девочек 8—10 лет уровень эстрона в сыворотке крови превышает уровень эстрадиола, то к 12 годам содержание эстрадиола начинает преобладать над содержанием эстрона. С наступлением первой менструации уровень ФСГ снижается, и характер секреции этого гормона приближается к таковому у взрослых. Секреция ЛГ повышается несколько позже и к 15—16 годам приближается к уровню его секреции у взрослых. Первые 1—2 года после наступления менструаций преобладают ановуляторные циклы (см. Ановуляторный цикл), к-рые постепенно сменяются овуляторными циклами (см. Овуляция). Окончательное формирование системы гипоталамус — гипофиз — яичники завершается к 17—18 годам, и основной характеристикой происходящих в яичнике у женщин репродуктивного возраста процессов являются циклические изменения — развитие фолликула, созревание яйцеклетки, овуляции и образование желтого тела, что обеспечивает репродуктивную функцию.
В пременопаузе секреция прогестерона, а затем и эстрогенов постепенно снижается; овуляторные циклы, сопровождающиеся повышением уровня ФСГ при неизменном содержании Л Г, сменяются ановулятор-ными с существенным снижением секреции эстрогенов. Менструации становятся нерегулярными. Периоды задержки менструаций с низким выделением эстрогенов сменяются периодами восстановления циклической деятельности яичника, но овуля-торный пик эстрогенов при этом выражен в меньшей степени.
В первые два года постменопаузы на фоне сниженной секреции эстрогенов периодически отмечаются кратковременные подъемы их уровня, что объясняется функционированием в яичниках единичных фолликулов. К 3—5-му году постменопаузы наблюдается выраженное снижение уровня эстрогенов, который в дальнейшем остается стабильно низким. Так же, как и перед наступлением менструаций в периоде полового созревания основным эстрогенным гормоном, образующимся в яичниках в периоде постменопаузы, становится эстрон. По данным Джадда (H. L. Judd) и сотр. (1982), основное количество эстрона в постменопаузе образуется за счет экстрагландулярного периферического превращения анд-ростендиона в эстрон. Секреция прогестерона с прекращением овуляции существенно снижается: к 3—5-му году постменопаузы уровень его в 2 раза ниже, чем у молодых женщин в ранней фолликулиновой фазе менструального цикла, причем основным источником прогестерона в этот период являются надпочечники. В постменопаузе яичники секретируют в основном андрогены (тестостерон и андр остендион).