Материал: Биохимия учебное пособие
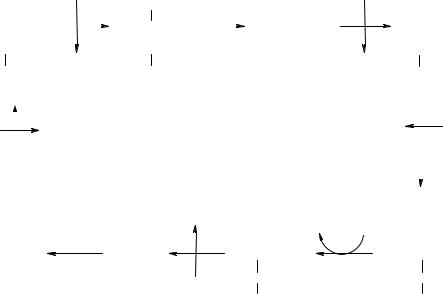
|
|
|
|
|
|
|
|
|
|
Ацетил-КоА |
|
|
COOH |
|
|
|
|
|
COOH |
НАД |
+ |
COOH |
|
|||||||||||||||||||||||
|
|
|
COOH |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
HO |
|
|
|
|
|
|
H |
|
|
|
|
|
|
|
|
O |
|
|||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
CH2 |
|
|
C |
|
|
|
|
|
|
||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
C |
|
|
|
|||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||
|
C |
|
|
|
O |
|
|
|
|
HO |
|
|
C |
|
COOH |
|
H |
|
|
C |
|
COOH |
–СО2 |
|
CH2 |
|
|
|
||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||
|
|
|
CH2 |
|
HSKoA |
|
|
|
CH2 |
|
|
|
|
|
|
CH2 |
НАДН2 |
|
CH2 |
|
|
|
||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||||||
|
COOH |
|
|
|
COOH |
|
|
|
|
|
COOH |
COOH |
|
|||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||
+ |
|
|
|
|
|
|
|
|
НАДH2 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
НАДН2 |
|
|
|
|
|
НАД |
+ |
||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||
НАД |
|
|
|
|
|
ЦИКЛ КРЕБСА |
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
–CСО22 |
|
|
|
+ HSКоА |
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
ФАДН2 |
|
|
|
|
|
|
|
|
ГТФ |
ГДФ + ФН |
SКоА |
|
||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||
|
|
COOH |
|
|
|
|
COOH |
COOH |
|
|
|
|
|
|
|
C |
|
|
O |
|
||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
+ H2O |
|
|
|
H |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||
HO |
|
C |
|
|
H |
|
|
|
|
|
C |
|
|
|
CH2 |
|
|
|
|
|
|
|
|
CH2 |
|
|||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||
|
H |
C |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
CH2 |
|
|||||||||||||||||||||||||||
|
|
|
|
CH2 |
|
|
|
|
|
|
|
|
ФАД |
|
CH2 |
|
|
|
HSКоА |
|
|
|
||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||
|
|
|
|
COOH |
|
|
|
|
COOH |
COOH |
|
|
|
|
|
|
|
COOH |
|
|||||||||||||||||||||||||||
Рис. 11. Общаясхемареакций циклаКребса
2.3. Тканевое дыхание и окислительное фосфорилирование
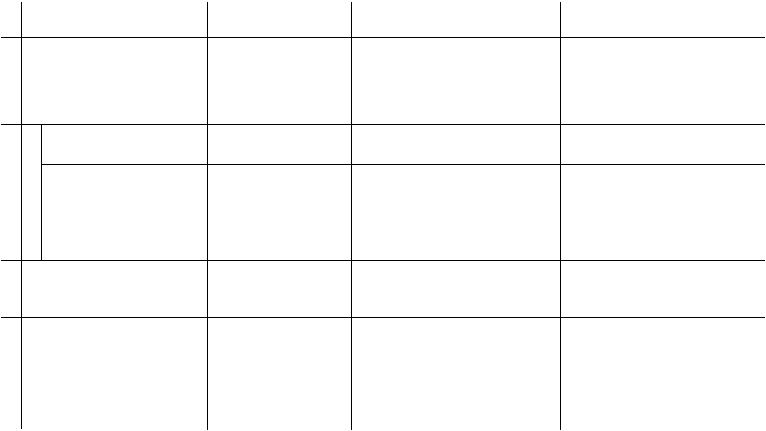
Заключительным этапом энергетического обмена служат протекающие в митохондрияхтканевоедыханиеиокислительноефосфорилирование.Тканевоедыхание– потреблениекислорода в дыхательной цепи митохондрий сэнергетической целью. Функциютканевогодыханиявыполняеткомплексферментов,локализованныхнавнутренней мембране митохондрий. Окислительноефосфорилирование– синтез АТФ навнутреннеймембранемитохондрийвприсутствиикислорода.Процессокислитель- ногофосфорилированиякатализируетсяферментомАТФ-синтазой.Краткаяхаракте- ристика структуры компонентов, необходимых для синтеза АТФ в митохондриях, представлена в табл. 4. Перейдем к рассмотрению механизма их работы.
Компонентыдыхательной цепи располагаютсяв мембранев порядкеповышения их сродства к электрону (ē). Таким образом, ē перемещается по дыхательной цепи от веществ с низким сродством к ē к веществам с более высоким сродством к ē. Окисление НАДН2 происходит следующим образом:
а) пара ē и протонов (Н+) переносятся с НАДН2 на флавопротеин – НАДН-де- гидрогеназу, которая направляет пару Н+ в межмембранное пространство, а пару ē – на железо-серные центры (FeS-центры) дыхательной цепи.
б)убихинон принимаетпаруēотжелезо-серныхцентров и паруН+ изматрикса, превращаясьввосстановленный убихинон,затемпереноситпаруН+ вмежмембранное пространство, а пару ē – на цитохром b566.
35
36
№ |
|
Компонент |
п/п |
|
|
|
|
|
1 |
Субстраты и ферменты БО |
|
2 |
цепь |
НАДН-дегидрогеназа |
|
b566 b582 c1 c a a3 |
|
|
Дыхательная |
|
|
|
Убихинон (коэнзим Q10) |
|
|
Цитохромы |
3 |
АТФ-синтаза |
|
4 |
Транслоказа адениловых |
|
|
нуклеотидов |
|
5 |
Переносчик фосфата |
|
Т а б л и ц а 4
КомпонентысистемысинтезаАТФвмитохондриях
Локализация |
Особенности структуры |
Функции |
НАД-зависимые – |
НАД-зависимые субстраты: изо- |
в матриксе, |
цитрат, -кетоглутарат,малат, пиру- |
ФАД-зависимые – |
ват, глутамат, -оксиацилКоА. |
во внутренней |
ФАД-зависимые субстраты: сукци- |
мембране |
нат, ацилКоА, -глицеролфосфат |
Внутренняя мембрана |
Флавопротеин; кофермент – ФМН; |
|
FeS-центр |
Внутренняя мембрана |
Производное хинона + радикал |
|
из 10 изопреновых звеньев |
Внутренняя мембрана |
Гемопротеины; кофермент – гем, |
|
у цитохромоксидазы – дополнитель- |
|
но атом Cu |
Внутренняя мембрана |
F0 – субъединица в мембране; |
и матрикс |
F1 – субъединица обращена |
|
в матрикс |
Внутренняя мембрана |
Белок-антипортер |
Внутренняя мембрана |
Белок-антипортер |
Восстановление НАД+ и ФАД, поставщики Н+ в дыхательную цепь
Перенос ē и Н+ с НАДН2
Перенос ē и Н+ с ФАДН2
Перенос ē на конечный акцептор – кислород
Транспорт Н+ из межмембранного пространства в матрикс и фосфорилирование АДФ
Перенос АТФ из матрикса в межмембранное пространство в обмен на АДФ
Перенос фосфата из межмембранного пространства в матрикс в обмен на ОН–
в) ē от цитохрома b566 передаются на цитохром b582, а затем на убихинон, принимающий паруН+ изматрикса ипревращающийсяв восстановленный убихинон. Затем восстановленный убихинон вновь передает пару Н+ в межмембранное пространство, а ē направляет на железо-серный центр.
г) с этого момента дыхательная цепь осуществляет транспорт толькоē, транспортН+ вматриксзавершен.Электроны,полученныеотжелезо-серногоцентра,транс- портируются по системе цитохромов с1, с, а и а3 на конечный акцептор – кислород.
д) цитохромы а и а3 тесно связаны друг с другом и получили общее название цитохромоксидаза, поскольку они непосредственно контактируют с молекулярным кислородом. В состав цитохромоксидазы входит не только гемовое железо, но и медь. В активном центре цитохромоксидазы происходит реакция
4ē + 4Н+ + О2 2Н2О.
Такимобразом,вдыхательнойцепимитохондрийосуществляетсячетырехэлектронное восстановление кислорода с образованием «метаболической воды».
В случае окисления ФАДН2 последовательность событий та же, но начинается с пункта (б): убихинон принимает пару ē и Н+ непосредственно от ФАДН2.
Установлено,чторазностьокислительно-восстановительныхпотенциаловмеж- ду первым (НАДН2) и последним (кислородом) компонентом дыхательной цепи составляет около 1,14 В, что создает запас энергии около 220 кДж, достаточный для синтеза 3 молекул АТФ. Поэтому вся дыхательная цепь условно может быть поделена на 3 участка, разность окислительно-восстановительных потенциалов в которых достаточна для синтеза 1 молекулы АТФ – 3 пункта сопряжения дыха- нияифосфорилирования:1-й–междуНАДН2 иНАДН-дегидрогеназой,2-й–между цитохромами b582 и с, 3-й – между цитохромами а и а3. Таким образом, окисление 1 молекулы НАДН2 в дыхательной цепи дает возможность синтезировать 3 молекулы АТФ, а 1 молекулы ФАДН2 – только 2 молекулы АТФ.
2.3.1. Хемиосмотическая теория
Для объяснения механизма окислительного фосфорилирования в 1961 г. П. Митчеллом была предложена хемиосмотическая теория. В обобщенном виде суть хемиосмотической теории можнопредставить следующимобразом: внутренняя мембрана митохондрий разделяет потоки ē и Н+ – первые транспортируются вдольмембраны, вторые–поперек, приэтомсоздаетсятрансмембранный электрохимический потенциал, обусловленный разностьюзарядов и концентраций протоновв матриксеимежмембранномпространствемитохондрий.Энергияэтогоэлектрохимическогопотенциала используется АТФ-синтазой для синтеза АТФ из АДФ и фосфата,т.е. дляфосфорилирования. Согласноконцепции П. Митчелла тканевое дыханиеи окислительноефосфорилирование сопряжены, а сопрягающим звеном междуними служитэлектрохимический потенциал:дыханиесоздаетего, а фосфорилирование расходует.
При переносе Н+ из матрикса в межмембранное пространство на внутренней мембране создается осмотический градиент протонов (химический потенциал)
37
рН = 60 мВ (при рН = 1) (в матриксе рН выше, чем в межмембранном пространстве). Так как каждый Н+ несет положительный заряд, на внутренней мемб-
ране также появляется разность электрических потенциалов V= 160 мВ, внут-
ренняя сторона мембраны заряжается отрицательно, внешняя – положительно. В сумме осмотический градиент протонов и разность потенциалов образуют
электрохимический потенциал, который составляет около 220 мВ.
Энергия образовавшегося на внутренней мембране митохондрий электрохимическогопотенциала можетиспользоватьсядля фосфорилированияАДФв АТФ, транспорта веществ через мембрану митохондрий и теплопродукции.
Сведенияоструктуреи функциях компонентов дыхательной цепи и АТФ-син- тазы обобщены в табл. 4.
2.3.2. Механизм окислительного фосфорилирования
Процесс фосфорилирования осуществляется АТФ-синтазой (Н+-АТФ-аза), которая потребляет 40–45 % свободной энергии, выделившейся при окислении. АТФ-синтаза представляетсобой интегральный белок, состоящий издвухсубъединиц –F0 и F1. Субъединица F0 –каналв мембране, предназначенный длятранспорта протонов из межмембранного пространства в матрикс. Субъединица F1 – каталитическая – именно она катализирует реакцию синтеза АТФ из АДФ и фосфата. Когда значение трансмембранного потенциала достигает критической величины 200–250 мВ, Н+ устремляются из межмембранного пространства в матрикс по открывшемуся каналу. Выделяющаяся в результате этого энергия расходуется ферментом на образование макроэргической связи АТФ из АДФ и фосфата – окислительноефосфорилирование. При каждомпереносеН+ черезканалF0 энергияэлектрохимического потенциала расходуется на поворот стержня субъединицы F1, в результате чего изменяется конформация фермента, облегчается связывание АДФ и фосфата.
2.4. Регуляция энергетического обмена
ЦиклКребса,тканевоедыханиеи окислительноефосфорилированиефункционируют в клетке согласованно. Главный принцип их согласованной регуляции: синтез АТФ должен отвечать потребностям клетки в нем. Когда в клетке активно происходит потребление АТФ, накапливается АДФ. Именно АДФ является главным стимулятором всех этапов энергетического обмена. Зависимость скорости дыхания клеток от концентрации АДФ получила название дыхательный контроль.
Дыхательный контроль осуществляется с участием 4 регуляторных ферментов ЦТК: цитратсинтазы, изоцитратдегидрогеназы, -кетоглутаратдегидрогеназ- ногокомплекса и малатдегидрогеназы. Эти ферменты ЦТК ингибируются НАДН2 и АТФ, которыеявляютсяпродуктами ЦТК и окислительногофосфорилирования. НАД+ и АДФ активируют эти ферменты ЦТК. Кроме того, скорость окислительного фосфорилирования напрямую лимитируется доступностью АДФ, который поступает в матрикс в обмен на АТФ.
38
Энергетический обмен находится также и под гормональным контролем. Инсулин через ряд промежуточных посредников активирует ЦТК на уровне -ке- тоглутаратдегидрогеназного комплекса, а также активирует окислительное декарбоксилированиепирувата, поставляющегоацетилкоэнзим А циклуКребса, и гликолиз, продуцирующий пируват. Хорошоизвестно, чтопри дефицитеинсулина,который развивается при сахарном диабете, эти аэробныепроцессы ингибированы, а пируват превращается в лактат. Стимулируют энергетический обмен в клетке гормоныщитовидной железы–тироксин и трийодтиронин. Поддействиемтиреоидных гормонов активируется перенос АДФ в матрикс митохондрии, ускоряются тканевое дыхание и синтез АТФ, а также увеличивается теплопродукция.
2.5. Другие пути использования кислорода
Известны также пути использования кислорода с пластическими целями. Реакции микросомальногоокисления, активнопротекающиев печени и надпочечниках, приводят к внедрению кислорода в окисляемый субстрат. Эндогенными субстратами микросомального окисления являются холестерин, стероидные гормоны, ненасыщенные жирныекислоты. Велико значениеэтогопроцесса для обезвреживания ксенобиотиков (чужеродных организмусоединений).
Небольшое количество кислорода в клетках превращается в активные формы– свободныерадикалы и их предшественники, способные нарушатьструктуру липидов, белков, нуклеиновых кислот. Для защиты от подобного повреждения
вклетках имеется антиоксидантная система, включающая ряд ферментов (каталаза, супероксиддисмутаза, глутатионпероксидаза, глутатионредуктаза) и низкомолекулярных органических веществ, в том числе витаминов А, С, Е, липоевой кислоты и глутатиона.
Сравнительная характеристика различных путей использования кислорода
вклетке представлена в табл. 5.
Вопросы для проверки усвоения материала
1.Понятие об обмене энергии в живых системах, биоэнергетике и биологическомокислении. Макроэргическиесвязи имакроэргическиесоединения, ихвиды
изначение. АТФ как универсальный энергоноситель. Пути генерации и использования АТФ в клетке, сравнительная характеристика окислительного и субстратногофосфорилирования.
2.Этапы утилизации энергии питательных веществ: подготовительный, промежуточный обмен и митохондриальный, сущность и значение. Образование и экскреция СО2 и Н2О – конечных продуктов метаболизма.
3.Цикл трикарбоновыхкислот(цикл Кребса):сущностьи биологическоезначение. Реакции цикла Кребса:субстраты, ферменты, коферменты. Регуляция цикла Кребса.
39