Материал: Биохимия учебное пособие
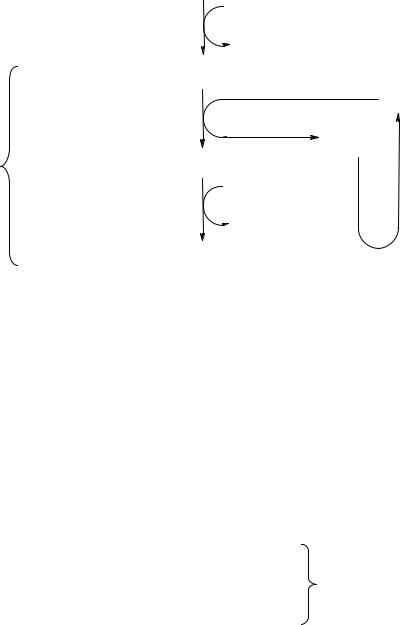
является единственным способом получения энергии для синтеза АТФ из АДФ и неорганического фосфата. На рис. 15 показаны участки гликолиза, на которых расходуется и образуется АТФ.
Глюкоза
|
2 АТФ |
|
Гексокиназа |
|
Фосфофруктокиназа |
|
2 АДФ |
|
Фосфоглицеральдегид |
|
НАД+ |
|
ГАФ-дегидрогеназа |
|
НАДН2 |
2 |
1,3-Дифосфоглицерат |
|
2 АДФ
Фосфоглицераткиназа
Пируваткиназа
2 АТФ
Пируват 
 Лактат
дегидрогеназа
Рис. 15. Участки гликолиза, связанныесзатратой иобразованием АТФ ванаэробных условиях
2 молекулы АТФ потребляются на активацию одной молекулы глюкозы (реакции 1 и 3).
Врезультатепревращений каждогоиздвухС3-фрагментов вреакцияхсубстратного фосфорилирования (реакции 7 и 10) образуются 2 молекулы АТФ.
НАДН2, который образуется в ходе окисления фосфоглицеральдегида на пятой стадии, окисляется в лактатдегидрогеназной реакции с образованием молочной кислоты и в получении АТФ не участвует.
Такимобразом,выигрышэнергииванаэробныхусловияхсоставляет2мольАТФ на моль глюкозы:
реакция1 |
–1 АТФ |
–1 АТФ |
|
|
реакция3 |
–1 АТФ |
–1 АТФ |
|
|
реакция6 |
+1 НАДН2 |
+3 АТФ |
|
|
реакция7 |
+1 АТФ |
+1 АТФ |
2 молекулы триозы |
|
реакция10 |
+1 АТФ |
+1 АТФ |
||
|
||||
реакция11 |
–1 НАДН2 |
–3 АТФ |
|
|
Итого: –2 + 2 (3 + 1 + 1 – 3) = 2 АТФ. |
|
|||
55
3.3.3. Расчет выхода АТФ при аэробном окислении
Большинство животных и растительных клеток в норме находится в аэробных условиях, и глюкоза полностью окисляется до СО2 и Н2О.
При наличии вклеткекислородаНАДН2, возникающий на 6-й стадии, направляетсявмитохондриинапроцессокислительногофосфорилирования.Тамегоокисление сопровождается синтезом 3 молекул АТФ.
Образовавшийся в гликолизе пируват в аэробных условиях под действием пируватдегидрогеназного комплекса превращается в ацетил-SКоА, при этом образуется 1 молекула НАДН2.
Ацетил-SКоАвовлекаетсяв циклКребса и,окисляясь,дает3молекулыНАДН2, 1молекулуФАДН2 и 1молекулуГТФ. При окислении НАДН2 и ФАДН2 в дыхательной цепи образуется еще 11 молекул АТФ. В целом при сгорании 1 ацетильного остатка образуется 12 молекул АТФ.
Суммируя «гликолитический» АТФ, результаты окисления «гликолитического»и пируватдегидрогеназногоНАДН2, энергетический выходцикла Кребса и умножая все на 2, получаем 38 молекул АТФ:
реакция1 |
–1 АТФ |
–1 АТФ |
|
реакция3 |
–1 АТФ |
–1 АТФ |
|
реакция6 |
+1 НАДН2 |
+3 АТФ |
|
реакция7 |
+1 АТФ |
+1 АТФ |
|
реакция10 |
+1 АТФ |
+1 АТФ |
|
ПВК-дегидрогеназа |
+1 НАДН2 |
+3 АТФ |
2 молекулы триозы |
ЦТК |
+1ГТФ |
+1 АТФ |
|
ЦТК |
+3 НАДН2 |
+9 АТФ |
|
ЦТК |
+1 ФАДН2 |
+2 АТФ |
|
Итого: –2 + 2 (3 + 1 + 1 + 3 +1 + 9 + 2) = 38 АТФ.
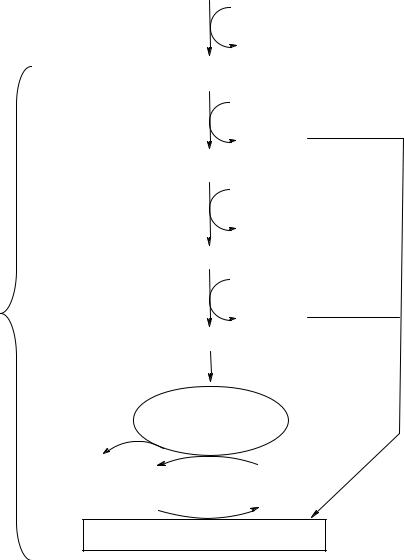
Очевидно, что в энергетическом отношении полное расщепление глюкозы является более эффективным процессом, чем анаэробный гликолиз (рис. 16).
Однако мембрана митохондрий непроницаема для НАДН2, поэтому перенос водорода с цитозольного НАДН2 в митохондрии осуществляется за счет челночного транспорта. Суть этого механизма сводится к тому, что НАДН2 в цитозоле восстанавливает некоторое соединение, способное проникать в митохондрию. В митохондрии это соединение окисляется, восстанавливая внутримитохондриальный НАД+, и вновь переходит в цитозоль. В качестве челнока работает глицеролфосфатный механизм или малат-аспартатная система (рис. 17, 18).
Если перенос водорода с НАДН2 происходит за счет глицеролфосфатного механизма, то реальное количество синтезируемых молекул АТФ меньше, так как энергия расходуется на транспорт НАДН2 из цитозоля через митохондриальную мембрану. Цитозольный НАДН2 сначала реагируетсцитозольнымдигидроксиаце- тонфосфатом,образуяглицерол-3-фосфат, который легкопроникаетчерезмембрану
56
|
Глюкоза |
|
|
2 АТФ |
|
|
Гексокиназа |
|
|
Фосфофруктокиназа |
|
|
2 АДФ |
|
|
Фосфоглицеральдегид |
|
|
НАД+ |
|
|
ГАФ-дегидрогеназа |
|
|
НАДН2 |
|
|
1,3-Дифосфоглицерат |
|
|
2 АДФ |
|
|
Фосфоглицераткиназа |
|
|
Пируваткиназа |
|
|
2 АТФ |
|
|
Пируват |
|
|
НАД+ |
|
2 |
ПВК-дегидрогеназа |
|
НАДН2 |
||
|
||
|
Ацетил-SКоА |
Цикл Кребса
ГТФ |
|
|
НАД + |
3 |
НАДН |
3 |
|
|
2 |
1 |
ФАД |
1 |
ФАДН2 |
Дыхательная цепь митохондрий
Рис. 16. Участкиаэробногоокисления глюкозы, связанные с затратой и образованием АТФ
митохондрии. Внутри митохондрии глицерол-3-фосфат окисляется до диоксиацетонфосфата с участием неНАД, а ФАД-зависимой глицерол-3-фосфат-дегидроге- назы. Восстановленный флавопротеин (фермент-ФАДН2) вводит приобретенные имэлектронывдыхательнуюцепьна уровнеKoQ. Такимобразом, параэлектронов (из одной молекулы цитозольного НАДН2), вводимая в дыхательную цепь с помощью глицеролфосфатного челночного механизма, дает не 3, а 2 АТФ и общий энергетический выход составляет не 38, а 36 молекул АТФ.
57
Фосфоглицеральдегид  1,3-Бисфосфоглицерат
НАД+ НАДН2
Цитозоль
1
-Глицерофосфат |
Диоксиацетонфосфат |
|
|
2 |
|
Внутренняя |
3 |
|
мембрана |
|
|
митохондрий |
ФАД2 |
в ЦПЭ |
ФАД |
Рис. 17. Глицеролфосфатныйчелнок:
1, 2 – окислительно-восстановительные реакции, обеспечивающие транспорт водорода из цитозоля
вмитохондрии на дыхательную цепь; 3 – ФАД-зависимая глицеролфосфатдегидрогеназа
Спомощьюданногочелночногомеханизма переносвосстановленныхэквива-
лентов от цитозольного НАДН2 в митохондрии осуществляется лишь в скелетных мышцах и мозге.
В клетках печени, почек и сердца действует более сложная малат-аспартатная челночная система (см. рис. 18).
Действие такого челночного механизма становится возможным благодаря присутствиюмалатдегидрогеназыиаспартатаминотрансферазыкаквцитозоле,так
ив митохондриях. Цитозольный НАДН2 восстановливает оксалоацетат домалата при участии фермента малатдегидрогеназы.
Малат с помощью системы, транспортирующей дикарбоновые кислоты, проходит через внутреннюю мембрану митохондрии в матрикс. Здесь малат за счет внутримитохондриального НАД+ окисляется в оксалоацетат, а восстановленный
НАДН2 передает свои электроны в цепь дыхательных ферментов.
В свою очередь, образовавшийся оксалоацетат в присутствии глутамата и фермента АСТ вступает в реакцию трансаминирования. Образующиеся аспартат
и-кетоглутарат спомощью специальныхтранспортных системспособны проходить через мембрану митохондрий. Трансаминирование в цитозоле регенерирует оксалоацетат, что вызывает к действию следующий цикл.
В целом процесс включает легкообратимые реакции, происходит без потребления энергии, в результате полного окисления одной молекулы глюкозы может образоваться не 36, а 38 молекул АТФ.
При переходе от анаэробных условий к аэробным накопление лактата в клетке прекращается в связи с его окислением в пируват. Первым это явление отметил Л. Пастер, сформулировав тезис о том, что с началом дыхания (т. е. потребления кислорода) брожение останавливается. Он определял брожение как жизнь без доступа кислорода.
58
Фосфоглицеральдегид  1,3-Бисфосфоглицерат
ÍÀÄ + |
ÍÀÄÍ2 |
|
1 |
|
Малат |
Оксалоацетат |
|
|
|
|
Глутамат |
Циòîçîлü |
|
|
|
|
|
-Кетоглутарат |
|
|
|
Аспартат |
|
Внутренняя |
3 |
|
4 |
мембрана |
|
||
ìиòîхîíдðий |
|
|
|
Мàòðикñ |
|
Аспартат |
|
ìиòîхîíдðий |
|
|
|
|
-Кетоглутарат |
||
|
|
||
|
Малат |
Оксалоацетат |
Глутамат |
|
|
||
|
|
2 |
|
|
ÍÀÄ + |
ÍÀÄÍ2 |
â ЦÏЭ |
Рис. 18. Малат-аспартатный челнок:
1, 2 – окислительно-восстановительные реакции, обеспечивающие транспорт водорода из цитозоля
âмитохондрии на дыхательную цепь; 3, 4 – транслоказы, обеспечивающие транспорт малата, аспартата
èглутамата через мембрану митохондрий
Механизм эффекта Пастера (блокирование брожения дыханием, сопровождаемое резким падением скорости утилизации глюкозы) объясняется тем, что в присутствии кислорода НАДН2 и пируват сразу после их образования утилизируются митохондриями. При переключении на аэробное окисление происходит убыль ранее накопленного лактата. Утилизация лактата, накопившегося в период дефицита кислорода, лежит в основе явления, которое получило название «ликвидация кислородной задолженности». Суть этого явления состоит в том, что после интенсивной мышечной работы легочное дыхание не сразу возвращается к норме, а некоторое время остается усиленным. Избыточное потребление кислорода в этот период определяется количеством лактата, накопившегося во время работы, недостаточно обеспеченной кислородом.
Таким образом, в отсутствие или при недостатке кислорода лактат не может не образоваться, а при достаточном снабжении кислородом он не может образоваться (ðèñ. 19).
59