Материал: Феофилова, Е. П. Фундаментальные основы микологии и создание лекарственных препаратов из мицелиальных грибов

© Национальная академия микологии, 2013
56 Фундаментальные основы микологии и создание лекарственных...
значительной степени определяют физиологический и мор- фогенетический ответ на изменения внешней среды, а также вирулентность. Полиамины (спермин, спермидин, путресцин)
–поливалентныеорганическиекатионы,принимаютучастиев регуляциитранскрипцииитрансляции,иихвнутриклеточный уровень быстро возрастает во время морфологических пере- ходов. S-аденозилметионин (SAM) является универсальным донором метильных групп у всех организмов, в том числе у грибов. ЕгоуровеньрегулируетсяактивностьюSAM-синтетазы иоказываетвлияниенаморфогенетическиепроцессы,участвуя
вметилировании клеточных белков.
Угрибов имеют отношение к диморфизму 2 главных пути передачи сигнала: с участием активируемой митогеном про- тенкиназы (МАПК-путь) и цАМФ-зависимой протеинкиназы А (ПКА-путь), которыесущественновлияютнапроявлениеди- морфизмаивирулентность.Основныеисследованияпроводятся на моделях Yarrowia lipolytica, Candida albicans, Cryptococcus neoformans, Saccharomyces cerevisiae, Neurosopra crassa, Ustilago maуdis, Magnaporte grisea. Трансмембранная передача сигнала может осуществлятьсячерез ионные каналы, рецепторные ки- назыиличерезрецептор-активируемыйэффекторныйфермент, который образует внутриклеточные вторичные мессенджеры. Таккакэффекторныеферментылокализованы наповерхности клетки, мессенджеры часто образуются из мембранных ком- понентов, основную массу которых составляют фосфолипиды. Мессенджер передает сигнал киназам в различные каскады, затем активируются факторы транскрипции и синтез белков, формируя, таким образом, физиологический ответ, который может быть задействован в процессе морфогенетической диф- ференцировки илидругих клеточных процессах.
Известно участие в контроле морфологических переходов (мицелий – дрожжеподобные клетки) не только мембранных фосфолипидов, но и стеринов, а также регуляторных липидов, не выполняющих структурной функции. Имеются сведения, что жирные кислоты также могут участвовать в регуляции морфологическихпереходовудиморфныхгрибов, связанныхс вирулентностью и отношениями хозяин – паразит.
http://www.mycology.ru
© Национальная академия микологии, 2013 |
|
Диморфизм у грибов и факторы, оказывающие влияние на ... |
57 |
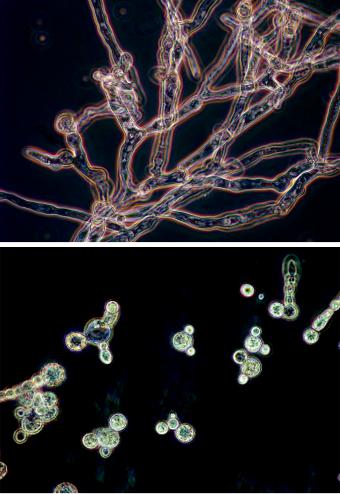
Мицелиальная (вверху) идрожжеподобная (внизу)
формы гриба Mucor hiemalis.
Такимобразом,явлениедиморфизма, вызываемоебольшим числом различных факторов, сопровождается изменениями практически всех биосинтетических и энергетических про- цессов, которые ведут за собой структурно-морфологические изменения, имеющие адаптивный характер и направленные на поддержание жизнеспособности в изменившихся условиях.
http://www.mycology.ru

© Национальная академия микологии, 2013
58 Фундаментальные основы микологии и создание лекарственных...
Процесс диморфной транзиции у грибов, значимых как в медицинском, так и в биотехнологическом аспектах, имеет глубокий биохимический, экологический и адаптационный смысл.Исследованиевлиянияразличныхвнешнихивнутренних факторов на морфогенез позволяет не только контролировать процессыростаипролиферацииувозбудителеймикозов,нотак- жерегулироватьреализациюбиотехнологическогопотенциала грибов:дляповышенияэффективностиштаммов-продуцентови разработкиусловий,способствующихмелкодисперсномуросту присохранениивысокихпоказателейвыходацелевыхпродуктов.
Такимобразом,исследованиядиморфизмагрибовпредстав- ляют не только теоретический интерес, но и имеют большое значениедлясовременноймедицины,ветеринарииисельского хозяйства.
Литература
Мысякина И.С., Фунтикова Н.С. Особенности метаболических процессов и состав липидов дрожжеподобных клеток и ми-
целия Mucor circinelloides var. lusitanicus ИНМИ при высоком содержании глюкозы в среде // Микробиология. 2008. Т. 77. № 4. С. 460–464.
Мысякина И.С. Бокарева Д.А., Усов А.И., Феофилова Е.П. Различия в составе углеводов дрожжеподобных клеток и мицелия Mucor hiemalis // Микробиология. 2012. Т. 81. № 4. С. 443 –446.
Bartnicki-Garcia S., Lippman E. Fungal morphogenesis: cell wall construction in Mucor rouxii // Science. 1969. V. 165. P. 302–304.
Domek D.B., Borgia P.T. Changes in the rate of chitin-plus-chitosan synthesis accompany morphogenesis ofMucor racemosus // J. Bacteriol. 1981. V. 146. P. 945–951.
Gancedo J.M. Control of pseudohyphae formation in Saccharomyces cerevisiae // FEMS Microbiol. Rev. 2001. V. 25. P. 107–123.
Inderlied C.B., Sypherd P.S. Glucose metabolism and dimorphism in Mucor // J. Bacteriol. 1978. V. 133. P. 1282–1286.
Ito E., Cihlar R.L., Inderlied C.D. Lipid synthesis during morphogenesis in Mucor racemosus // J. Bacteriol. 1982. V. 152. P. 880–887.
Jensen E.C., Ogg C., Nickerson K.W. Lipoxygenase inhibitors shift the yeast/mycelium dimorphism in Ceratocystis ulmi // Appl. Environ. Microbiol. 1992. V. 58. № 8. P. 2505–2508.
http://www.mycology.ru
© Национальная академия микологии, 2013 |
|
Диморфизм у грибов и факторы, оказывающие влияние на ... |
59 |
Klose J., de Sa M.M., Kronstad J.W. Lipid-induced filamentous growth in Ustilago maydis // Mol. Microbiol. 2004. V. 52. № 3. P. 823–835.
Kobayashi S.D., Cutler J.E. Candida albicans hyphal formation and viru- lence: is there a clearly defined role? // Trends Microbiol. 1998. V. 6. P. 92–94.
Kolattukudy P.E., Rogers L.M., Li D., Hwang C.S., Flaishman M.A. Sur- face signaling in pathogenesis // Proc. Natl. Acad. Sci. USA. 1995. V. 92. P. 4080–4087.
Kumar C.P., Menon T., Sundararajan T., Nalini S., Thirunarayan M.A., Rajasekaran S., Venkatadesikalu M. Esterase activity of Candida species isolated from immunocompromised hosts // Rev. Iberoam Mycol. 2006. V. 23. № 2. P. 101–103.
Lengeler K.B., Davidson R.C., D’Souza C., Harashima T., Wei-Chiang Shen, Ping Wang, Xuewen Pan, Waugh M., Heitman J. Signal trans- duction cascades regulating fungal development and virulence // Microbiol. Mol. Biol. Revs. 2000. V. 64. № 4. P. 746–785.
Madhani H.D., Fink G.R. The control of filamentous differentiation and virulence in fungi // Trends in Cell Biol. 1998. V. 8. P. 348–353.
Noverr M.C., Huffnagle G.B. Regulation of Candida albicans morpho- genesis by fatty acid metabolites // Infect. Immun. 2004. V. 72. № 11. P. 6206–6210.
Orlowski M. Мuсоr dimorphism // Microbiol. Rev. 1991. V. 55. № 2. P. 234–258.
Pereyra E., Ingerfeld M., Anderson N., Jackson S.L., Moreno S. Mucor rouxii ultrastructure: cyclic AMP and actin cytoskeleton // Proto - plasma. 2006. V. 228. № 4. P. 189–199.
Vanden Bossche H. Importance and role of sterols in fungal mem- branes // Biochemistry of cell walls and membranes in fungi / Eds. Kuhn P.J., Trinci A.P.J., Jung M.J., Goosey M.W., Copping L.G. Berlin, Heidelberg, New York, London, Paris, Tokyo, Hong Kong: SpringerVerlag, 1990. P. 135–157.
http://www.mycology.ru

© Национальная академия микологии, 2013
Глава 5
Современныепредставленияострессе иегоиспользованиев биотехнологии
Стресс (от анг. stress – давление, напор, гнёт, нагрузка, на- пряжение) неспецифическая (общая) реакция организма на воздействие,котороенарушаетегогомеостаз.Ввелэтоттермин канадский врач Г. Селье, который писал в своей книге «Стресс без дистресса», вышедшей в 1982 г., что стресс есть жизнь, а жизньестьстресс.
Общим для всех организмов является то, что под действием стрессарезкоостанавливаютсяростовыепроцессыиразмноже- ние и полностью изменяется метаболизм.
Согласно современным представлениям, под действием стрессаорганизм проходитследующие 3 стадии:
(1)стадия тревоги или ошеломления, которое длится очень недолго (секунды или даже наносекунды); в течение этой стадиивырабатываетсяпрограммапротивостояниястрессу, но резистентностьоказывается ниже нормы;
(2)далеенаступаетстадияадаптации,илирезистентность,при этом сопротивляемостьорганизма возрастает; и, наконец,
(3)выходизстрессавстадиюгомеостаза,еслистресснеоказался летальным.
Интересно отметить, что живые организмы, в принципе, придерживаются двух типов стратегии выживания. Первый тип,наименеераспространенныйвприроде,формулируетсвою стратегию – выживаю, сопротивляясь стрессу. К этому типу стратегиивыживанияотносятся,восновном,млекопитающие, втомчислечеловек.Этиморганизмам,которыеактивноборют- ся со стрессом, например с низкой температурой, приходится
60
http://www.mycology.ru