Материал: Биохимия учебное пособие
NH2
N
 N
 N
 N
рибоза
Ф
АМФ
 ФН
NH2
N
 N
 N
 N
рибоза
Аденозин
H2O 
 NH3
OH
N
 N
 N
 N
рибоза
Инозин
 Рибоза
OH
N
 N
 N
 NH
Гипоксантин
Ксантиноксидаза
|
. |
H2O, О2 |
H+, O2 |
|
|
O |
H |
N |
N |
|
|
H2N N
 N
рибоза
Ф
ГМФ
 ФН
|
|
O |
H |
N |
N |
|
|
H2N N
 N
рибоза
Гуанозин
 Рибоза
|
|
O |
|
H |
N |
|
N |
|
|
|
|
H2N |
|
N |
N |
|
|
H
Гуанин
H2O 
 NH3
O |
|
H |
N |
N |
|
O N |
N |
H |
H |
|
Ксантин
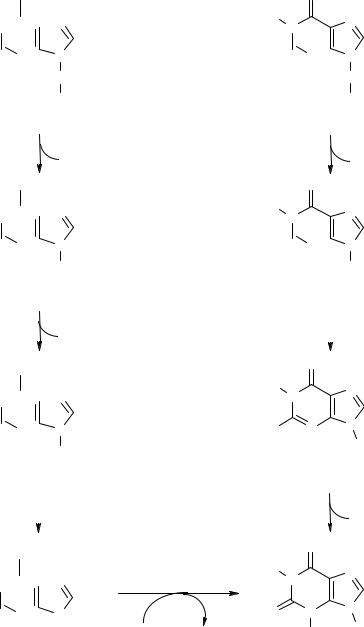
Рис. 24. Реакции расщепленияпуриновыхнуклеотидов
95
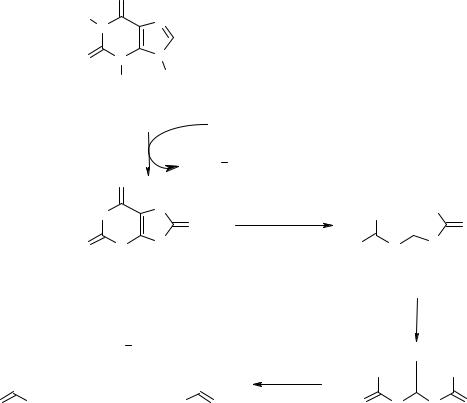
У всех остальных наземных животных конечным продуктом катаболизма пуринов являетсяболеерастворимый аллантоин, который образуетсяв ходедальнейшего окисления мочевой кислоты.
O |
|
H |
N |
N |
|
O N |
N |
H |
H |
|
Ксантин
H2O, О2
Ксантиноксидаза .
|
|
H+, O |
O |
|
2 |
|
|
|
N |
NH |
H2O |
|
NH |
O |
O N |
|
|
H |
|
|
Мочевая кислота
|
|
COO |
|
|
|
|
H2O |
||
NH |
2 + |
|
CHO |
+ |
|
NH |
2 |
||
|
|
|
|
|
|
||||
O NH2 |
H2N |
|
O |
|
|||||
Мочевина Глиоксилат Мочевина
H2N O
 NH O
O N NH
H
Аллантоин
COOH H2N NH2
O N N O
H H
Аллантоиновая кислота
У некоторых животных аллантоин может распадаться далее до мочевины и аммиака.Уамфибийирыбаллантоингидролизуетсядоаллантоиновойкислоты.Вомногихорганизмахаллантоиноваякислота расщепляетсядомочевиныи глиоксилата.
5.10. Катаболизм пиримидиновых оснований
Основной путькатаболизма пиримидиновых оснований, образующихсяв результате гидролиза пиримидиновых нуклеотидов, протекает через восстановлениеурацила и тимина дополностью гидрированных структур – дигидроурацила и дигидротимина соответственно. Цитозин также расщепляется по этому пути после егодезаминирования до урацила (рис. 25).
96
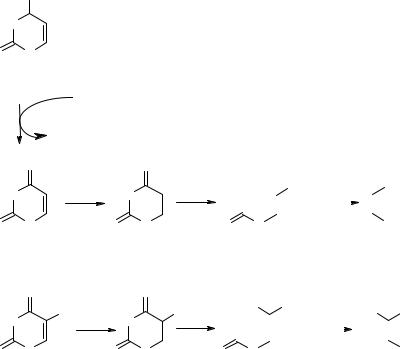
Раскрытиекольца в дигидроурацилеи последующий гидролиз приводят к образованию -аланина, углекислогогаза и аммиака. Аналогичныереакции при расщеплении тимина дают -аминоизомасляную кислоту, углекислый газ и аммиак.
NH2
N 
ON H
Цитозин
|
|
H2O |
|
|
|
|
NH3 |
|
|
|
O |
|
|
O |
HN |
|
[H] |
N |
|
O |
N |
O |
|
N |
|
H |
|
|
H |
Урацил |
Дигидроурацил |
|||
|
O |
|
|
O |
HN |
|
CH3 [H] |
N |
CH3 |
O |
N |
O |
|
N |
|
H |
|
|
H |
Тимин Дигидротимин
|
N |
|
|
|
COOH H O |
|
|
COOH |
|||||
|
|
|
|
2 |
|
|
|
|
+ CO2 + NH3 |
||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
O |
N |
|
|
|
|
|
|
NH2 |
|||||
|
|
|
H |
|
|
|
|
|
|
|
|
||
-Уреидопропионовая |
-Аланин |
||||||||||||
|
кислота |
|
|
|
|
|
|
|
|
||||
|
H3C |
COOH |
H3C |
|
COOH |
||||||||
N |
|
|
|
|
|
H2O |
|
||||||
|
|
|
|
|
|||||||||
|
|
|
|
|
|
|
|
+ CO2 + NH3 |
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
O |
N |
|
|
|
|
|
|
|
NH2 |
||||
|
|
|
H |
|
|
|
|
|
|
|
|
||
-Уреидомасляная |
-Аминоизо- |
||||||||||||
кислота |
|
|
|
|
масляная кислота |
||||||||
Рис. 25. Катаболизм пиримидиновыхоснований
Продукты катаболизма пиримидинов выводятся из организма или повторно используются в других метаболических процессах. Так, аммиак включается в орнитиновый циклобразованиямочевины. -аланин используетсямикрофлорой кишечника при биосинтезепантотеновой кислоты(витамин В3), которая, в своюочередь, необходима для синтеза коэнзима А и ацилпереносящего белка, участвующегов синтезежирныхкислот. -аминоизомаслянаякислота участвуетв реакциях трансаминирования с -кетоглутаратомсобразованием метималоновогополуальдегида, который используется в синтезе пропионата и сукцината.
97
5.11. Анаболизм нуклеотидов
Почти все организмы способны синтезировать пиримидиновые и пуриновые нуклеотиды из простых соединений, например, из СО2, NH3, аспартата, глицина, глутамина и рибозы.
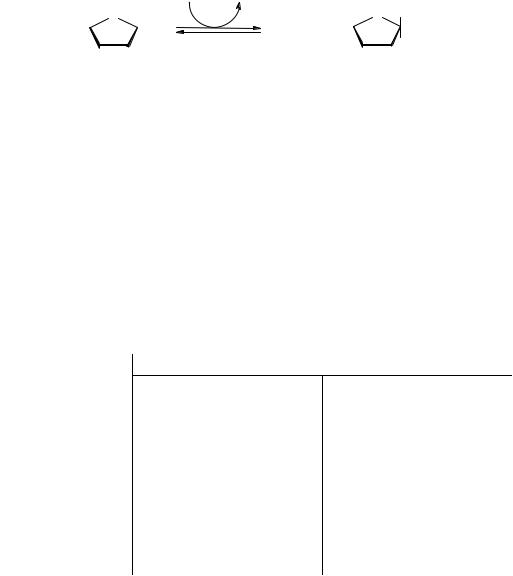
В синтезеобоих типов нуклеотидов фосфорибозильный фрагмент переносится в виде 5-фосфорибозил-1-пирофосфата (ФРПФ), который образуется при фосфорилировании рибозо-5-фосфата –промежуточногометаболита пентозофосфатногопути:
|
|
O |
|
|
|
|
|
АТФ |
АМФ |
|
|
O |
|
|
|
|
|
|
O |
|
|
|
O |
||||||||||||||
HO |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
P |
|
|
O |
|
|
|
O |
OH |
|
|
HO |
|
P |
|
O |
|
|
O O |
|
|
P |
|
O |
|
O |
|
OH |
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||
|
|
OH |
|
H |
H |
|
|
|
|
|
OH |
|
H |
H O |
|
|
|
O |
|||||||||||||||||||
|
|
|
|
|
|
H |
|
|
|
|
|
|
|
|
|
|
|
|
|
H |
|
|
H |
|
|
|
|
|
|
|
|||||||
|
|
|
H |
Фосфорибозилпирофосфат |
|
|
|
|
|
|
|
||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||
|
|
|
|
|
|
|
|
|
OH |
|
OH |
|
синтетаза |
|
|
|
|
|
|
|
OH |
OH |
|
|
|
|
|
|
|
||||||||
Рибозо-5-фосфат |
|
|
|
|
|
|
|
|
|
5-Фосфорибозил-1-пирофосфат |
|||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
(ФРПФ) |
|
|
|
|
|
|
|
|||||||
Для синтеза пуриновых и пиримидиновых нуклеотидов существуют отдельныепути. Метаболическиепути, ведущиекобразованиюпуриновыхи пиримидиновыхнуклеотидов, различаютсяв основномтем, накакомэтапесинтеза возникает-гликозидная связь (табл. 9). При синтезе пуринов эта связь образуется на первом этапе, и циклическая система строится уже после того, как связь образовалась. В отличие от этого синтез пиримидинового кольца завершается еще до образования связи между этим кольцом и рибозо-5-фосфатом.
Т а б л и ц а 9
Сравнительнаяхарактеристикапутейсинтеза пуриновыхипиримидиновыхнуклеотидов
[cм.:2,с.331]
Особенности
синтеза
Последовательность
синтеза
Ключевая реакция
Путь синтеза
Пуринов |
Пиримидинов |
1. Образование N-гликозидной 1. Сборка кольцевой структуры. связи. 2. Образование N-гликозидной 2. Сборка кольцевой структуры связи
Образование фосфорибозилаОбразование карбамоилфосфата мина (фосфорибозиламидотранс- (карбамоилфосфатсинтетаза) фераза)
Локализация в клетке |
Цитозоль |
Митохондрии и цитозоль |
Регуляция |
Торможение ИМФ, АМФ и ГМФ |
Торможение УТФ карбамоилфос- |
|
на нескольких уровнях |
фатсинтетазы |
98
Первымпродуктомнуклеотидной природыпуриновогопути являетсяинозин- 5-монофосфат(ИМФ),пиримидиновогопути–уридинмонофосфат(УМФ).ИзИМФ и УМФ получаются все остальные пуриновые и пиримидиновые нуклеотиды соответственно.
5.11.1. Биосинтез пуриновых мононуклеотидов
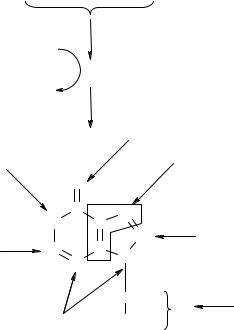
Биосинтез первого пуринового нуклеотида – ИМФ – включает 10 ферментативных реакций и протекает с затратой энергии АТФ (рис. 26). Формирование пуринового кольца начинается сразу на рибозо-5-фосфате, к которому присоединяются атомы азота и углерода. Источниками этих атомов являются аминокислоты глицин, глутамин, аспарагиновая кислота. Часть атомов углерода поставляется коферментами, содержащими в своем составе фолиевую кислоту и биотин. В результате последующих реакций происходит последовательная сборка пуринового кольца на этой основе.
СО2, аспартат, глицин, 2 глутамин 2 С1 – тетрагидрофолат ФРПФ
|
4 АТФ1 |
... |
10 ферментативных реакций |
|||
|
|
|||||
4 АДФ + 4 Фн |
|
|
|
|
|
|
|
|
|
|
Из СО2 |
Из глицина |
|
Из аспартата |
|
|
|
|
|
|
|
O |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
6 |
|
|
|
|
|
1 |
C 5 |
N |
7 |
|
|
|
HN |
C |
C |
8 |
Из метенилтетрагидрофолата |
|
|
C |
2 |
|
|
||
Из формилтетрагидрофолата |
4C |
9 |
|
|
|
|
|
|
N |
N |
|
|
|
|
|
3 |
|
|
|
|
|
|
|
рибоза |
Из ФРПФ |
||
|
|
|
Ф |
|
||
Из амидного азота глутамина |
|
|
||||
Инозин-5/-монофосфат (ИМФ)
Рис. 26. Биосинтез пуриновыхмононуклеотидов
99