Материал: Биохимия учебное пособие
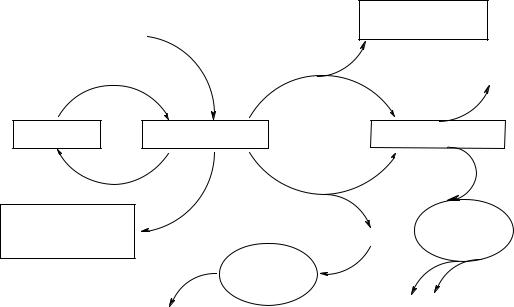
а также включаться в конечный продукт обмена азота – мочевину и экскретироваться из организма. Безазотистые углеродные остатки аминокислот образуют чащевсегокетокислоты, которыедалеедеградируют пообщимпутям катаболизма других окисленных углеводородов. Включаясь в общиепути катаболизма, аминокислоты могут служить источником энергии. Основныепути использования аминокислот представлены на рис. 21.
ЗАМЕНИМЫЕ Синтез АМИНОКИСЛОТЫ
из углеводов
|
|
|
Глюконеогенез |
|
|
|
Синтез кетоновых тел |
Распад |
Трансаминирование |
|
|
БЕЛКИ |
АМИНОКИСЛОТЫ |
-КЕТОКИСЛОТЫ |
|
Синтез |
Дезаминирование |
|
|
НЕБЕЛКОВЫЕ |
|
|
Цикл |
АЗОТСОДЕРЖАЩИЕ |
|
NH3 |
|
|
Кребса |
||
СОЕДИНЕНИЯ |
Цикл |
|
|
Биогенные амины |
|
|
|
мочевино- |
|
|
|
Гормоны |
образования |
|
|
Нуклеотиды |
|
|
CO2 H2O |
Гем |
Мочевина |
|
|
Креатин и др.
Рис. 21. Основныепутииспользованияаминокислот
В организме создается фонд аминокислот, который пополняется из следующихисточников:
–аминокислотыпищи;
–аминокислоты, образующиеся при катаболизме собственных белков;
–аминокислоты, синтезируемые самими клетками.
При этом возможности синтеза аминокислот в организме существенно ограничены. В табл. 7 указаны незаменимые аминокислоты, которые не могут быть синтезированыклетками из-за отсутствияисточников синтеза, поэтомуихприсутствие в белках пищи обязательно. Выделяют также частично заменимые аминокислоты, которые могут синтезироваться в небольших количествах в организме, и условно заменимые аминокислоты, для синтеза которых необходимы незаменимые аминокислоты. Потребность в заменимых аминокислотах может быть восполнена синтезомиз другихсоединений.
80
|
|
|
Т а б л и ц а 7 |
|
Заменимыеинезаменимыеаминокислоты |
|
|
Незаменимые |
Условно заменимые |
Частично заменимые |
Заменимые |
Валин |
Тирозин |
Аргинин |
Аланин |
Изолейцин |
Цистеин |
Гистидин |
Аспарагин |
Лейцин |
|
|
Аспартат |
Лизин |
|
|
Глицин |
Метионин |
|
|
Глутамат |
Треонин |
|
|
Глутамин |
Триптофан |
|
|
Пролин |
Фенилаланин |
|
|
Серин |
Аминокислотный состав определяет биологическую ценность белка. Чем выше содержание незаменимых аминокислот, тем больше его пищевая ценность. Полноценными белками в питании считаются те, которые содержат незаменимые аминокислоты в нужном количественном и качественном соотношении.
5.3. Общие пути обмена аминокислот
Общиепути обмена аминокислотвключаютреакции дезаминирования, трансаминированияи декарбоксилирования:
Декарбокси- |
Трансами- |
|
|
лирование |
нирование |
КЕТОКИСЛОТЫ |
|
АМИНЫ |
ПУЛСВОБОДНЫХ |
И ЗАМЕНИМЫЕ |
|
АМИНОКИСЛОТ |
|||
|
АМИНОКИСЛОТЫ |
||
|
|
||
|
Дезамини- |
|
|
|
рование |
|
КИСЛОТЫ И АММИАК
Реакции трансаминирования (переаминирования) являются наиболее важ-
ными реакциями среди общих путей обмена аминокислот. Они играют основную роль в процессеглюконеогенеза и образования новых аминокислот. Cуть этой ре- акции–обратимый переносаминогруппысаминокислотына кетокислотубезпромежуточного образования аммиака. Катализируют реакции трансаминирования
81
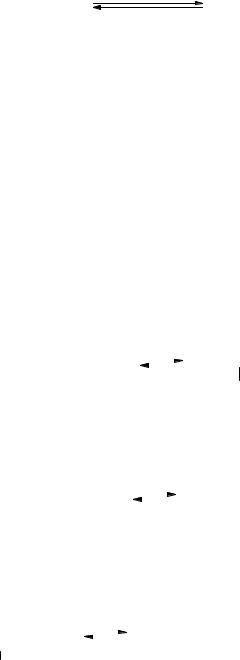
ферменты трансаминазы (аминотрансферазы), в роли кофермента выступает пиридоксальфосфат (активная форма витамина В6):
|
|
COOH |
|
COOH |
Аминотрансфераза |
COOH |
|
|
|
COOH |
|||||||||||
|
|
|
(пиридоксальфосфат) |
|
|
|
|||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
H2N |
|
C |
|
H + |
C |
|
O |
|
C |
|
O + H2N |
|
C |
|
H |
||||||
|
|
|
|
|
|
|
|||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
R |
|
(CH2)2 |
|
R |
|
|
|
(CH2)2 |
|||||||||||
|
|
|
|
|
|||||||||||||||||
Аминокислота |
|
COOH |
|
Кетокислота |
|
|
|
COOH |
|||||||||||||
|
|
|
|||||||||||||||||||
-Кетоглутарат |
Глутамат |
||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
||||||||||||
Впереаминировании участвуетмногоаминокислот(кромелизина, треонина), наиболееактивнымиявляютсяглутаминовая, аспарагиноваякислоты,чтосвязывают с высоким содержанием в тканях животных двух специфических аминотрансфераз – аспартатаминотрансферазы и аланинаминотрансферазы.
Аминотрансферазыучаствуютвсинтезеновыхаминокислотиз -кетоглутара- та. Этот синтез возможен и для получения незаменимых аминокислот, если с пищей будут поступать соответствующие кетокислоты.
Дезаминирование – реакция, в ходе которой аминогруппа освобождается в виде аммиака. Механизмы дезаминирования могут быть различными:
а)восстановительноедезаминирование(собразованиемнасыщенной жирной кислоты):
|
|
COOH |
|
|
|
|
|
COOH |
|
|
|||
H2N |
|
|
|
+ |
2H |
|
|
|
|
|
+ |
NH3 |
|
|
|
CH |
|
|
|
CH2 |
|||||||
|
|
|
|
||||||||||
|
|
|
|
|
|
||||||||
|
|||||||||||||
|
|
|
|
|
|
|
|
|
R |
|
|
||
|
|
R |
|
|
|
|
|
|
|
||||
б) гидролитическое дезаминирование (с образованием карбоновой гидроксикислоты):
|
|
COOH |
|
|
|
|
|
|
|
COOH |
|
|||
H2N |
|
|
|
+ |
H2O |
|
|
|
HO |
|
|
|
+ NH3 |
|
|
|
CH |
|
|
|
CH |
||||||||
|
|
|
|
|
|
|||||||||
|
|
|
|
|
||||||||||
|
|
|
|
|
|
|||||||||
|
||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
R |
|
|
|
|
|
|
|
R |
|
|||
в)элиминирующеедезаминирование(собразованиемненасыщенныхжирных кислот):
COOH |
|
|
|
COOH |
|
|
||||||
|
|
|
NH2 |
|
|
|
|
|
|
|
|
|
|
CH |
|
|
|
|
CH |
+ |
NH3 |
||||
|
||||||||||||
|
|
|
|
|
|
|
|
|
|
|
||
|
CH2 |
|
|
|
|
CH |
|
|||||
|
|
|
|
|
|
|
||||||
|
|
|
|
|
|
|
|
|||||
R |
|
|
|
R |
|
|
||||||
82
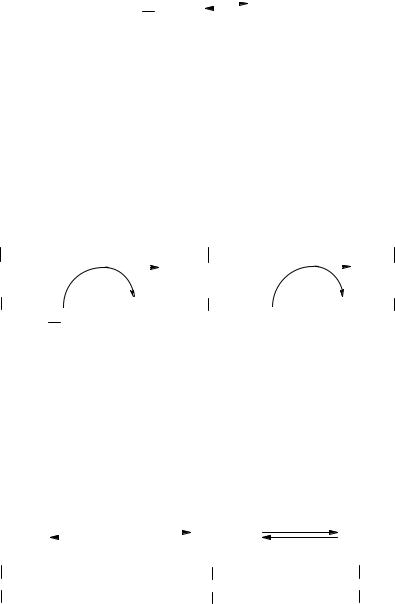
г) окислительное дезаминирование (с образованием кетокислот). У человека окислительное дезаминирование является основным путем катаболизма аминокислот:
|
|
COOH |
|
|
|
|
|
COOH |
|
|
||||
H N |
|
|
|
1 |
O |
|
|
|
|
|
|
|
|
|
|
|
CH + |
|
|
|
C |
|
O |
+ NH |
3 |
||||
|
|
|
|
|
|
|||||||||
|
||||||||||||||
|
|
|
|
|
|
|||||||||
2 |
|
|
|
2 |
2 |
|
|
|
|
|
|
|
|
|
|
|
R |
|
|
|
|
|
R |
|
|
|
|
||
Выделяют два типа окислительного дезаминирования: прямое и непрямое. Если в ходе дезаминирования аминогруппа сразу превращается в аммиак, то реакция называется прямым окислительным дезаминированием. Прямое окислительноедезаминированиеможетпроисходить как в аэробных, таки в анаэробных условиях:
1. Аэробное прямое окислительное дезаминирование катализируется оксида-
зами D-аминокислот и L-аминокислот сучастием коферментов ФАД и ФМН соответственно. Реакции, катализируемые оксидазами, в клетках протекают медленно.
Оксидазы
COOH DD--и L-амнокислот COOH COOH (ФАД или ФМН)
H2N |
|
|
CH |
|
|
|
|
C |
|
NH |
|
|
|
C |
|
O |
||
|
|
|
|
|
|
|
|
|
|
|
||||||||
|
|
|
|
|
|
|
|
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
CH2 |
1 |
|
|
CH2 |
NH3 |
CH2 |
|||||||||
|
|
R |
O2 |
H2O |
R |
|
H2O |
R |
||||||||||
|
|
|
|
2 |
|
|
|
|
|
|
|
|
|
|
||||
Аминокислота |
|
|
|
|
Иминокислота |
|
|
Кетокислота |
||||||||||
2. Анаэробное прямое окислительное дезаминирование существует толь-
ко для L-глутаминовой кислоты и катализируется ферментом глутаматдегидрогеназой. Фермент присутствует в митохондриях всех клеток организма (за исключением мышечных). Глутаматдегидрогеназная реакция нуждается в присутствии коферментов НАД+ или НАДФ+:
|
|
|
COOH |
|
|
+ НАД(Ф)+ |
|
|
|
COOH |
COOH |
||||||
|
|
|
Глутаматдегидрогеназа |
|
|||||||||||||
H2N |
|
|
|
H2O |
|
||||||||||||
|
|
CH |
|
|
|
|
|
C |
|
NH |
C |
|
O + NH3 |
||||
|
|
|
|
|
|
|
|
|
|||||||||
|
|
|
|
|
НАД(Ф)Н2 |
|
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
CH2 |
|
|
|
|
|
CH2 |
|
CH2 |
||||||
|
|
|
|
|
|
|
|
|
|
||||||||
|
|
|
CH2 |
|
|
|
|
|
|
CH2 |
|
CH2 |
|||||
|
|
|
COOH |
|
|
|
|
|
COOH |
COOH |
|||||||
Глутаминовая |
|
|
|
|
Иминоглутарат |
-Кетоглутарат |
|||||||||||
кислота |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||
83
В ходе дезаминирования глутамата аминогруппа сразу превращается в аммиак. Реакция дезаминирования глутамата ферментом глутаматдегидрогеназой об-
ратима. Обратная реакция – восстановительное аминирование -кетоглутара-
та – служит источником глутамата в клетках и обезвреживает аммиак.
Все аминокислоты, кроме глутаминовой, дезаминируются непрямым путем. Непрямое окислительное дезаминирование активно протекает во всех клетках организма и состоит из двух этапов:
1.Трансаминирования с -кетоглутаратом с образованием глутамата;
2.Прямого окислительного дезаминирования глутамата.
Врезультате трансаминирования -кетоглутарат превращается в глутамат,
ааминокислоты теряют аминогруппы и превращаются в -кетокислоты. Далее их углеродный скелет катаболизируется специфическими путями и вовлекается в цикл Кребса, где сгорает до углекислого газа и воды.
Глутаминовая кислота является коллектором всех аминогрупп, и только она подвергается прямому окислительному дезаминированию с образованием аммиака и -кетоглутаровой кислоты.
Аминокислота |
-Кетокислота |
|
1-й этап: |
Трансаминирование |
|
-Кетоглутарат |
Глутамат |
|
2-й этап: |
Прямое окислительное |
|
дезаминирование |
||
|
||
NH3 |
H2O |
Такимобразом, реакцияпрямогоокислительногодезаминированиятесносвязана с трансаминированием аминокислот. Сопряжение реакций трансаминирования и дезаминирования направляет поток лишнего аминного азота в печень для синтеза мочевины и в почки для синтеза аммонийных солей.
Декарбоксилирование аминокислот катализируется декарбоксилазами, коферментом которых является пиридоксальфосфат. Продукты декарбоксилирования обладают высокой биологической активностью, и с этим связано их название «Биогенные амины» (табл. 8):
Декарбоксилаза
COOH Декарбоксилаза
(Пиридоксальфофат)
(Пиридоксальфосфат)
H2N |
|
|
CH |
|
CO2 |
H2N |
|
CH2 |
|
|
|
|
|||||
|
|
|
||||||
|
|
R |
|
|
|
R |
||
|
|
|
|
|
|
|||
84