Материал: Биохимия учебное пособие
противоположные происходящим в субстрате, то такие коферменты можно рассматриватькак второй субстратили косубстрат. Болеетого, иногда именнопревращения кофермента имеют физиологическое значение, например, образование НАДН2 в ЦТК и его окисление в дыхательной цепи.
1.3.1. Активный центр ферментов
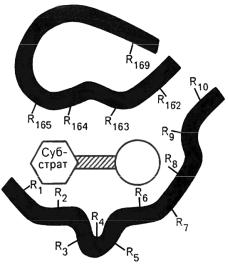
Ферменты характеризуются наличием специфических центров катализа. Активный центр – это часть молекулы фермента, которая специфически взаимодействует с субстратом и принимает непосредственное участие в катализе. Активный центр, как правило, находится не на поверхности молекулы фермента, а в узком гидрофобномуглублении(нише), чтоблагоприятствуетсозданиювысокойконцентрации субстрата (рис. 1). Активные центры ферментов формируются на уровне третичной структуры. Любые воздействия, приводящие к денатурации, т. е. нарушению третичной структуры, приводятк разрушению структурыактивногоцентра и, соответственно, к потере ферментом каталитических свойств.
В активном центре условно можно выделить два участка: субстратсвязывающий участок (контактная площадка), который обеспечивает специфическое комплементарноесвязываниесубстрата,и собственнокаталитический центр, непосредственно вступающий в химическое взаимодействие с субстратом. В активный центр фермента часто входит участок для связывания кофактора.
Большинство субстратов соединяется с активным центром в нескольких точках. Благодаря этому молекула субстрата связывается с активным центром единственно возможным способом, что обеспечивает избирательность дальнейших химическихпревращений.
Рис. 1. Активныйцентр фермента (схема поМалеруиКордесу):
темныеполосы–участкиполипептиднойцепифермента;R– аминокислотныеостаткииихпорядковые
номера (с N-конца) [см.: 1, с. 123]
10
1.3.2. Аллостерические центры ферментов
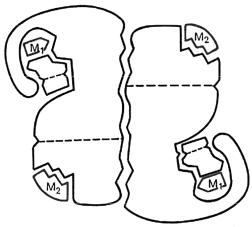
У группырегуляторныхферментов помимоактивногоцентра, в молекулефермента может присутствовать также аллостерический центр или центры (от греч. allos – другой и steros – пространственный, структурный), которыенаходятся за пределами активногоцентра. К аллостерическомуцентрумогутприсоединятьсямолекулымодуляторов (активаторов или ингибиторов), регулирующиеактивностьферментов. Присоединение модулятора к аллостерическомуцентру изменяет конформацию молекулы фермента и, соответственно, конфигурацию активного центра, вызывая повышениеили снижение активности фермента (рис. 2).
S
S
Рис. 2. Схематическоеизображение аллостерическогофермента, состоящегоиз двух протомеров:
S – субстрат; М1 – модификатор, связывающийся в активном центре; М2 – эффектор, связывающийся в аллостерическом центре [см.: 1, с. 126]
Аллостерические центры известны далеко не у каждого фермента. Обычно они присущи ферментам, обладающим четвертичной структурой, которыелегчеподдаются весомым конформационным перестройкам. У фермента может быть несколько разных аллостерических центров. Благодаря их избирательности, активность фермента по-разному меняется под действием различных модуляторов.
1.4. Изоферменты
Изоферменты – это множественные формы фермента, катализирующие одни и тежереакции, ноотличающиесяпофизическими химическим свойствам (сродствоксубстрату, скоростькатализируемой реакции, электрофоретическаяподвижность, различная чувствительность к ингибиторам и активаторам, термостабильность, оптимум рН).
11
В качестве примера можно рассмотреть лактатдегидрогеназу (ЛДГ) – фермент, катализирующий обратимуюреакцию:
НАД+ НАДН2
ЛДГ  Лактат

 Пируват
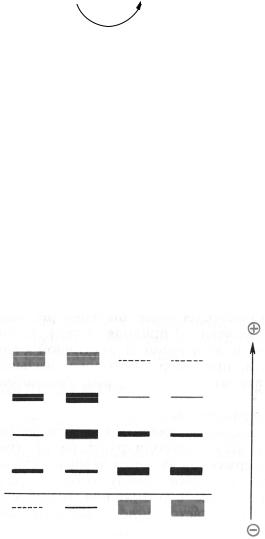
Этот фермент существует в виде 5 изоформ, каждая из которых состоит из 4 протомеров (субъединиц) двух типов (М и Н). Изоферменты ЛДГ различаются на уровне четвертичной структуры: ЛДГ1 – 4Н; ЛДГ2 – 3Н1М; ЛДГ3 – 2Н2М; ЛДГ4 – 1Н3М; ЛДГ5 – 4М. Полипептидные цепи Н- и М-типа имеют одинаковую молекулярную массу, но в составе первых преобладают дикарбоновые аминокислоты, последних–диаминокислоты, поэтомуони несутразный зарядимогутбыть разделены методом электрофореза. Обозначениеизоформ принятов соответствии
сих подвижностью к аноду (рис. 3).
Впроцессе индивидуального развития организма происходит изменение со-
держания изоформ в той или иной ткани. У зародыша преобладают ЛДГ4 и ЛДГ5. После рождения происходит изменениесодержания изоформ в некоторых тканях.
В миокарде, надпочечниках, где доминирует аэробный обмен, преобладают ЛДГ1 и ЛДГ2. В тканях, где сохранился анаэробный обмен, преобладают ЛДГ4 и ЛДГ5 (скелетная мускулатура, печень).
ЛДГ1
ЛДГ2
ЛДГ3
ЛДГ4
Старт
ЛДГ5
Сердце Почки Печень Мышцы
Рис. 3. Распределениеиотносительныеколичества изоферментовЛДГвразличныхорганах. Экстракты нанесены на линию, отмеченную надписью «Старт». При заданных условиях опыта(рН)4 изоферментаЛДГ движутсяк аноду, аодин(ЛДГ5) –ккатоду[см.: 1, с. 128]
Существование изоформ повышает адаптационную возможность тканей, органов и организма в целом к меняющимся условиям. Определениеизоферментного спектра плазмы крови ЛДГ имеет клинико-диагностическое значение для дифференциальной диагностики:при инфарктемиокарда преобладают ЛДГ1 и ЛДГ2, а при заболеваниях печени – ЛДГ4 и ЛДГ5.
12
1.5.Специфичность ферментов
Вотличиеот неорганических катализаторов ферменты характеризуются специфичностью действия. Специфичность действия фермента определяется структурой активногоцентра.
Ферментможет обладать чрезвычайновысокой избирательностьюпоотношению к субстрату. Например, фермент уреаза распознает только одно вещество – мочевину, катализируя ее расщепление до СО2 и аммиака:
|
|
|
NH2 |
|
|
Уреаза |
|
O |
|
|
NH2 |
+ |
H2O |
|
CO2 + 2 NH3 |
|
|
||||||
|
|
|
|||||
|
|||||||
|
|
|
|
|
|
|
|
Мочевина |
|
|
|
|
|||
Еслиферменткатализируетпревращениеопределенногоединственногосубстрата, такая специфичность называется абсолютной субстратной специфичностью. Однако встречается она редко.
Обычно субстратная специфичность бывает относительной (групповой). Это означает, чтофермент способен ускорять однотипную реакцию угруппы сходных по строению веществ. Например, алкогольдегидрогеназа катализирует окисление нетолькоэтанола, нои другихалифатических спиртов:
|
|
|
|
НАД+ |
НАДН2 |
||||||
H3C |
|
CH2 |
OH |
|
|
H3C |
|
C |
|
O |
|
|
|
|
|||||||||
|
|
||||||||||
|
|
|
|
||||||||
|
|
|
|
|
|
||||||
|
|
|
|
|
|
|
|
H |
|||
Этанол |
|
Ацетальдегид |
|||||||||
К числу ферментов с групповой специфичностью относятся пищеварительные ферменты. Так, пепсин, относящийся к протеазам, расщепляет пептидные связи в белках как животного, так и растительного происхождения, отличающихся поаминокислотномусоставу. Основнымместомдействияпепсина являетсяпептидная связь –СО–NН–. Липазы, расщепляющие сложноэфирные связи, катализируютгидролизжиров на глицерин и жирныекислоты, нонедействуютна пептидные связи.
Стереохимическая специфичность обусловлена существованием оптически изомерных L- и D-форм или геометрических изомеров химических веществ. Например, ферментфумаразакатализируетпревращениефумаровойкислоты(транс- изомер), но не действует на малеиновую кислоту (цис-изомер):
13
HOOC |
|
C |
|
H |
|
|
Фумараза |
HOOC |
|
|
|
CH2 |
||||
|
|
+ |
H2O |
|
|
|
|
|||||||||
|
|
|
|
|||||||||||||
|
|
|
|
|
|
|
|
HO |
|
|
C |
|
COOH |
|||
H |
|
C |
|
COOH |
|
|||||||||||
|
|
|
|
|
|
|||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
H |
|||
транс-изомер |
|
|
|
|
|
|
|
|
|
|
||||||
Фумаровая кислота |
|
|
|
L-яблочная кислота |
||||||||||||
Фумараза
H C COOH
+ H2O
H C COOH
цис-изомер
Малеиноваякислота
Большинствоферментов, участвующихв превращенияхаминокислот,действуют лишь на L-изомеры, а ферменты, катализирующие превращения углеводов – на D-изомеры углеводов.
Таким образом, благодаря специфичности действия, ферменты обеспечивают протеканиесвысокой скоростьюлишьопределенныхреакций изогромногоразнообразия возможных превращений в микропространстве клеток и целостном организме, регулируя тем самым интенсивность обмена веществ.
1.6. Механизм действия ферментов
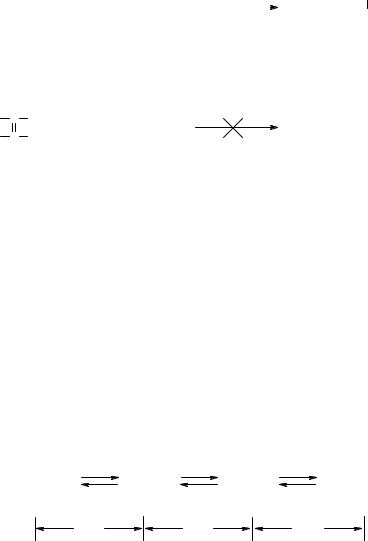
Любая ферментативная реакция включает несколько промежуточных этапов
(рис. 4):
k+1 |
k+2 |
E S* |
k+3 |
E + S |
E S |
E + P |
|
k–1 |
|
|
|
I |
II |
|
III |
Рис. 4. Основныеэтапыферментативногокатализа
Этап I – сорбция субстрата (S) субстратсвязывающим участком активного центра фермента (Е) с образованием ферментсубстратного комплекса (E–S). Этот этап реализуетсяза счетобразованияслабыхневалентныхвзаимодействий, поэтомуполностью обратим. Конформационныеизменения в процессесорбции усиливают пространственное соответствие активного центра и субстрата.
Этап II – ковалентное преобразование субстрата в составе ферментсубстратного комплекса, в результате чего появляется комплекс с химически измененным субстратом (E–S*). В этом этапе участвует собственно каталитический центр, который обеспечивает разрыв одних и формирование других химических связей.
14