Курсовая работа (т): Явление паразитизма в животном мире
Паразиты в процессе жизнедеятельности нередко осуществляют миграцию в организме хозяина и способны таким образом вначале обитать в полостных органах, а затем перемещаться в ткани внутренней среды. Таковы трихинелла и свиной цепень. Возможен переход от эктопаразитизма к паразитированию в тканях внутренней среды. К таким видам относятся, например, личинки вольфартовой мухи.
Отсутствие четких границ между разными формами паразитизма отражает объективную ситуацию - эволюцию этого экологического феномена.
Своеобразной экологической группой паразитов являются сверхпаразиты. В качестве среды обитания и источника питания они используют другие паразитические организмы. Обычно сверхпаразиты еще более мелкие и низко организованные, чем паразиты (рис. 3.1.1). Они могут поражать как простейших, так и многоклеточных паразитов. Сверхпаразитизм - очень широко распространенное явление. Так, подсчитано, что только один вид свободноживущих бабочек - луговой мотылек Loxostege sticticalis - является хозяином 40 видов паразитов, за счет которых существуют еще 12 видов сверхпаразитов. Среди сверхпаразитов, обитающих в паразитах человека, известны несколько видов микроспоридий, относящихся к классу споровиков и встречающихся в цитоплазме балантидия, в клетках паренхимы цепней и в гонадах аскарид.
Сверхпаразиты имеют огромное экологическое значение, выполняя
функции стабилизаторов численности популяций паразитов. Медицинское значение
сверхпаразитов еще недостаточно изучено, но не исключено, что и в популяциях
человека они могут играть роль факторов, сдерживающих численность паразитов.
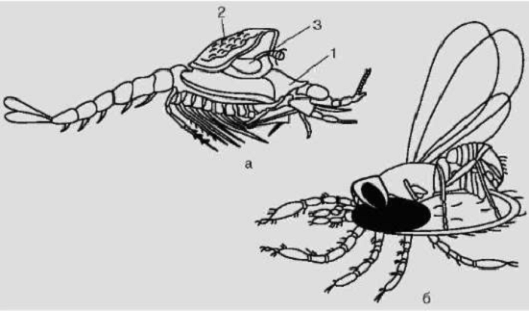
а - рачок Erythrops (1) с паразитическим ракообразным Aspidophryxus (2), на котором находится сверхпаразит Aspidoecia normani (3); б - наездник Ixodiphagus sp. откладывает яйцо в нимфу собачьего клеща
Рисунок 3.1.1 - Сверхпаразиты
3.2 Специфический ответ хозяина на паразитизм
Одно из свойств паразита - мозаика различных молекул, которые при распознавании хозяином как чужеродные называются иммуногенами (или антигенами). Антигеном является любое вещество, которое при соответствующих условиях способно индуцировать синтез антител и взаимодействовать с ними, образуя комплекс антиген-антитело. Антитела - это гликопротеины, синтезируемые в ответ на антиген и способные реагировать в различной степени с молекулами, имеющими сходное строение с антигенами.
Паразит или любая его часть, узнаваемая хозяином как антигенная, в обычном случае индуцирует клеточные и гуморальные реакции. При многих инвазиях трудно разграничить клеточный и гуморальный ответы, поскольку они развиваются одновременно. Эффективность ответных реакций зависит от природы паразита и стадии инвазии [3,5].
Клеточные реакции возникают при участии клеточных механизмов специфической защиты. При клеточных реакциях специализированные клетки мобилизуются, чтобы ограничить распространение или разрушить паразита.
Основная роль в развитии клеточного иммунитета принадлежит Т-лимфоцитам. При распознавании антигена Т-клетки дифференцируются в Т-клетки памяти и Т-клетки эффекторные. Функционирование этих специализированных Т-клеток происходит несколькими способами. Например, Т-клетки памяти возвращаются в состояние «покоя» и служат источником новых антигенспецифических Т-клеток в любой момент, когда тот же самый антиген может вновь проникнуть в организм. Т-клетки эффекторные могут быть функционально разделены на две группы: клетки Т-хелперы (Th) и цитотоксические Т-клетки (Тс) [10].
Исходный тип Th-клетки можно дифференцировать на подгруппы клеток, которые различаются по секретируемым цитокинам: клетки Th-1 и Th-2. Большая часть Т-клеточной активности обеспечивает синтез и высвобождение различных химических медиаторов, называемых цитокинами. Цитокины взаимодействуют с разнообразными клетками, необходимыми для ряда иммунологических процессов. Th-1-клетки в типичном случае секретируют интерлейкин-2 (IL-2), у-интерферон (IFN-y) и фактор некроза опухоли (TNF).
Эти цитокины поддерживают воспалительный процесс, активируют макрофаги и индуцируют размножение естественных киллеров (NK). Th-2-клетки обычно секретируют несколько цитокинов, среди которых IL-4, IL-5 и IL-10. Они активируют В-клетки и иммунные ответы, которые зависят от гуморальных антител. Как правило, преобладание Th-1 ассоциируется с острым течением инфекции и последующим выздоровлением, Th-2 - с хроническим течением болезни и аллергическими проявлениями. Тh-1-клетки обеспечивают защиту от внутриклеточных простейших, Th-2-клетки необходимы для изгнания кишечных гельминтов [5,8].
Гуморальный ответ как таковой необходим для уничтожения внеклеточных паразитов, например локализующихся в крови, жидкостях организма или кишечнике. Главным фактором гуморальных механизмов защиты является выработка специфических антител в ответ на поступление антигенов паразита. В образовании циркулирующих в крови антител участвуют В-клетки. Благодаря их общей глобулярной структуре антитела называют иммуноглобулинами и обозначают как Ig. Описано 5 классов структурно сходных молекул антител - IgA, IgM, IgG, IgD, IgE.участвуют в развитии иммунных реакций в основном на поверхности слизистой оболочки. IgM относятся к макроглобулинам и синтезируются раньше других иммуноглобулинов. IgG являются преимущественно антитоксинами и антибактериальными веществами, IgD выполняют роль антигенраспознающих рецепторов В-лимфоцитов. IgE - эффекторы аллергии и противопаразитарного иммунитета. С IgE связана реакция гиперчувствительности немедленного типа. Они обладают сродством к тучным клеткам организма [9,10].
Адсорбируясь на них, эти антитела, как правило, не циркулируют в крови или же находятся в ней в весьма незначительном количестве. В таком случае при проникновении в организм антигенов, к которым уже имеются IgE-антитела, иммунная реакция с их участием протекает не в крови, а на поверхности тучных клеток и приводит к их разрушению. Высвобождающиеся при этом в большом количестве биологически активные вещества, которыми богаты тучные клетки, обусловливают картину реакции немедленного типа, классическим примером которой является анафилактический шок.
Содержание IgM повышается при трипаносомозе и малярии, IgG - при малярии и висцеральном лейшманиозе.
Антитела способны непосредственно нейтрализовать паразитов, препятствуя их прикреплению к новым клеткам, например, при инфекциях, вы-
зываемых различными видами малярийных паразитов. Мерозоиты проникают в эритроциты с помощью специальных рецепторов. Этот процесс ингибируют специфические антитела. Антитела могут также предотвращать распространение инфекции, например, в острой фазе инфекции, вызванной Т. Cruzi [4,7].
Гуморальные антитела могут также реагировать с экскреторносекреторными веществами паразита, образуя иммунные комплексы, некоторые из которых могут связываться, вызывая дисфункцию органа.
Антитела как сами по себе, так и в сочетании с комплементом (термолабильными ферментами крови, синтезируемыми макрофагами) эффективно действуют против внеклеточных паразитов. Комплекс антиген-антитело взаимодействует с системой комплемента, в результате чего паразит может погибнуть. Фагоцитарный и цитотоксический потенциал эффекторных клеток (макрофагов, нейтрофилов, эозинофилов) усиливается антителами, наиболее эффективно при участии комплемента.
Паразитарные инфекции нередко приводят к эозинофилии (повышенное количество эозинофилов в крови). IgA, IgG, IgE могут взаимодействовать с мембранно-связанными антигенами на поверхности паразита. Определенные участки этих иммуноглобулинов взаимодействуют с соответствующими рецепторными участками на поверхности эозинофилов. Это взаимодействие стимулирует эозинофилы к высвобождению лизосомных гидролаз или других цитотоксических факторов, разрушающих паразита [3,5].
При некоторых паразитарных заболеваниях вырабатывается стойкий иммунитет (например, при лейшманиозе, трипаносомозе), при гельминтозах (аскаридозе, энтеробиозе) иммунитет относительный, поэтому возможны повторные заражения. Иммунологические показатели изменяются преимущественно в личиночной стадии развития гельминтов. Несмотря на развитие иммунных реакций, гельминт способен длительное время сохраняться в организме вследствие наличия у него выраженных иммуносупрессивных свойств и антигенов, общих с антигенами хозяина, утраты гельминтом рецепторов, обеспечивающих развитие эффекторных иммунных механизмов. Все это ведет к хронизации инвазии.
Паразитарные инвазии сопровождаются образованием больших
количеств неспецифических антител, спленомегалией, гепатомегалией.
ЗАКЛЮЧЕНИЕ
В данной работе были рассмотрены такие вопросы, как явление и происхождение паразитизма. Было рассмотрено происхождение паразитизма также и на эволюционном уровне. Были глубоко изучены такие известные вопросы как формы паразитизма, морфологические, анатомические, и репродуктивное приспособления паразитов.
Также были рассмотрены адаптивные приспособления паразитов на молекулярном уровне, а также биохимический ( иммунный, специфический) ответ хозяина. Данные темы представляют на сегодняшний день большой интерес, так как именно в этих областях сегодня ведутся научные исследования.
Углубленное исследование с целью борьбы с паразитизмом, конечно же, является на сегодняшний день важной задачей в области паразитологии, так как таким образом становится известно все большее количество препаратов, как для животных, так и для людей. Это, конечно же, является большим и неоспоримым плюсом. Однако нельзя также забывать, что паразитизм произошел в процессе так называемой коэвалюции не просто так, лишь как вид совместного сожительства, не совсем выгодного одному из партнеров.
Помимо негативных последствий, паразитизм как явление несет регулирующую функцию с экологической точки зрения. Паразитизм прямо или косвенно для многих особей является фактором сдерживающим численность популяции. Так как животный мир является частью экосистемы, то нарушение численности хотя бы нескольких видов организмов, может нанести существенный ущерб всей экосистеме в целом, что неизбежно приведет к нарушению работы экосистемы и энергетическому обмену в целом, что может привести к непоправимым последствиям.
библиографический список
1. Г. Стенд. Молекулярная генетика // Молекулярная Генетика: учеб. Пособие - Мир 2012 - Гл.6. - С. 111- 124.
. Ярыгин В.Н., Васильева В.И. Биология // Биология: учеб. Пособие М. - Высшая Школа стр. 334- 350.
3. Медицинская паразитология // Рефераты на русском [Электронный ресурс]. - 2013. - Режим доступа: http://ru.referatus.com.ua/biologiya/medicinskaya-parazitologiya-obshie-voprosy-referat/?page=3. - Дата доступа: 10.02.2015.
4. Значение биологии как фундаментальной науки // ГенДокс [Электронный ресурс]. - 2013. - Режим доступа: http://do.gendocs.ru/docs/index-212476.html. - Дата доступа: 15.02.2015.
. Паразитология // Учебные материалы [Электронный ресурс]. - 2011. - Режим доступа: http://works.doklad.ru/view/holuYvgPXyw.html. - Дата доступа: 15.02.2015.
6. Биология Конспект Лекций // Пятифан [Электронный ресурс]. - 2011. - Режим доступа: http://5fan.ru/wievjob.php?id=2400. - Дата доступа: 18.02.2015.
7. Виды паразитизма // Альбест [Электронный ресурс]. - 2013.
. Лекция по паразитизму // Публикации [Электронный ресурс]. - 2012. - Режим доступа: http://www.antiplagiat.ru/go?to=mVAMHaT5YncZaCqkTC25hfR9VbbLP4lxI-75qbjhNiHHhpxDAVYdAQV8_2fkEJrVUkiKUF7NxOaTwOs5diQae7OngCRuR-9RMF61FHa5d3Y6iBNb0. - Дата доступа: 18.02.2015.
. Принципы иммунотерапии // Адвентус [Электронный
ресурс]. - 2012. - Режим доступа:
http://www.adventus.info/medicine/infect/203.php. - Дата доступа: 18.02.2015.