Курсовая работа (т): Явление паразитизма в животном мире
Явление паразитизма в животном мире
ОГЛАВЛЕНИЕ
Введение
Глава 1. Явление паразитизма в животном мире
1.1 Определение паразитизма
1.2 Происхождение паразитизма
Глава 2. Морфологические, экологические, этологические и другие адаптивные приспособления к паразитическому образу жизни у животных
2.1 Морфологические приспособления к паразитизму
2.2 Молекулярная мимикрия
2.3 Развитие половой системы и особенности жизненного цикла
2.4 Редукция систем органов у паразитов
2.5 Этологическая адаптация
2.6 Экологическая адаптация
Глава 3. Особенности взаимоотношений между хозяином и паразитом
3.1 Формы паразитизма
3.2 Специфический ответ хозяина на паразитизм
Заключение
Библиографический
список
ВВЕДЕНИЕ
паразитизм мимикрия животное
Паразитизм как явление для изучения возник достаточно давно. Это связано с тем, что как в аграрной ветви, в ветеринарии так и в медицине данное явление имеет широкое распространение. Данный вопрос является весьма важным для изучения, так как в последние годы ведутся разработки различных видов лекарств направленных на борьбу как с эктопаразитизмом, так и эндопаразитизмом. Также это касается не только растительного, но и животного мира.
Целью данной работы являлось рассмотрение и углубленное изучение таких важных вопросов как определение и происхождение паразитизма, адаптивные приспособления к паразитическому образу жизни у животных, экологические и этологические адаптации.
Также были затронуты и относительно новые темы в изучении особенностей паразитизма, такие как молекулярная мимикрия и специфический ответ хозяина на паразитизм. Если такие темы как морфологические приспособления к паразитизму и формы паразитизма как таковые,- изучены на сегодняшний день достаточно хорошо, то молекулярная мимикрия и специфический ответ - являются достаточно новой темой для исследования, так как именно в этих областях, с учетом современного оснащения и продвижения науки вперед как на биохимическом так и на молекулярном уровне,- изучение данных вопросов представляет большой интерес в области создания лекарств, специфических инсектицидов. С помощь биохимических исследований уже можно сдерживать численность популяций многих паразитов животных.
Так как данное явление носит распространенный характер и вносит порой
большой ущерб также и в экономическую область - например, в животноводстве, где
количество получаемого готового продукта, или сырья напрямую зависит от
жизненных показателей особей, рассмотрение на углубленном уровне паразитизма
как явления, а также изучение молекулярных механизмов - является на сегодняшний
день одной из лидирующих областей в науке.
Глава 1. Явление паразитизма в животном мире
1.1 Определение паразитизма
В различных биоценозах организмы связаны между собой межвидовыми и внутривидовыми биотическими взаимодействиями. Наибольшее значение для медицины имеет паразитизм - форма взаимоотношений между организмами разных видов, при которой один организм (паразит) использует другого (хозяина) как источник питания и временную или постоянную среду обитания, нанося ему определенный вред. Паразит физиологически и экологически зависит от организма хозяина в течение определенной части своего жизненного цикла. Высокий репродуктивный потенциал паразита приводит к тому, что величина популяции паразита обычно значительно превышает численность популяции хозяина, и этот признак отличает паразитизм от хищничества.
Паразитический образ жизни могут вести самые разнообразные организмы. Все вирусы являются паразитами, их изучает отдельная наука - вирусология. Паразитические прокариоты изучает микробиология, паразитические грибы - микология, паразитизм в растительном мире - фитопатология, паразитов-животных, или зоопаразитов, - паразитология. В свою очередь паразитология включает следующие разделы: медицинскую протозоологию, изучающую паразитические формы простейших; медицинскую гельминтологию, изучающую паразитических червей, и медицинскую арахноэнтомологию, изучающую опасных для человека членистоногих.
На долю зоопаразитов приходится 6-7 % от общего числа известных видов животных, однако среди первично-примитивных форм паразитизм встречается более часто, чем среди высокоорганизованных организмов [1].
Паразиты в экосистемах являются консументами 2-го и 3-го порядков и играют существенную роль в биотическом круговороте веществ. Самые патогенные из них, вызывающие гибель большого числа особей хозяев, выступают какстабилизаторы численности хозяев, избыток которой мог бы привести к нарушению экологического баланса. Вместе с тем наиболее тяжелое течение паразитарных заболеваний обычно наблюдается у особей с ослабленным иммунитетом, имеющих наследственные дефекты или врожденную предрасположенность к аллергическим реакциям. Гибель именно этих организмов оказывает на генетическую структуру популяций хозяина благотворное влияние, убирая из его аллелофонда аллели, снижающие жизнеспособность [5]. Таким образом, взаимоотношения между популяциями хозяев и паразитов в условиях конкретных биогеоценозов способствуют их устойчивости и одновременно выступают как фактор естественного отбора, снижая неспецифический генетический груз популяции хозяина.
В связи с социальностью человека паразитизм как фактор естественного отбора в настоящее время практически не имеет значения в человеческих популяциях, однако целенаправленная борьба человека с паразитами, несомненно, является важным фактором эволюции самих паразитов.
.2 Происхождение паразитизма
Происхождение паразитизма отличается многообразием. Даже один тип паразитизма, например эктопаразитизм, в разных группах животных мог возникнуть разными путями. Можно выделить следующие главные пути возникновения паразито-хозяинных отношений.
Большая часть эктопаразитов происходит от хищников. Комары, москиты и другие кровососущие насекомые мало чем отличаются от обыкновенных хищников. Клопы демонстрируют дальнейший переход к паразитизму, так как их контакт с телом хозяина во время питания становится более длительным. У некоторых клещей (например, Ixodes) мы наблюдаем еще более длительный контакт с хозяином, который в еще большей степени развит у блох, у которых только личинки и куколки живут на свободе, а половозрелые особи большую часть жизни проводят на хозяине. От этих длительных, но все же периодических паразитов остается лишь один шаг до постоянных, остающихся в течение всей жизни и во всех стадиях развития на хозяине. Необходимо только, чтобы и яйца, как это можно наблюдать у вшей, не выбрасывались во внешнюю среду, а откладывались и развивались здесь же, на хозяине [8].
В основе еще одного пути возникновения эктопаразитизма лежит сидячий образ жизни, когда малоподвижные животные прикрепляются не к обычному субстрату (дну водоема, почве, растениям), а к другому организму.
В появлении эктопаразитизма несомненную роль сыграл также постепенный переход мелких хищников от полифагии к моногфагии, т. е. все большее их специализирование в смысле характера пищи.
Происхождение эндопаразитизма в отдельных случаях также можно связать с предшествующим ему эктопаразитизмом. Примером могут служить некоторые клещи-пухоеды, которые затем мигрировали с перьев птиц в подклювный мешок и стали питаться кровью.
В некоторых случаях путь к эндопаразитизму лежал через изменение инстинкта откладки яиц. Вместо откладки яиц на гниющем материале они могли случайно попасть и развиваться на язвах и ранах животных, где условия оказались более благоприятными. Такое явление можно проследить у личинок вольфартовой мухи и оводов.
Между тем большинство случаев внутреннего паразитизма, а именно случаи кишечного паразитизма, представляют собойвторичное явление, развившееся в результате случайного заноса в пищеварительную систему яиц или покоящихся стадий свободноживущих организмов.
Таким образом, можно говорить о нескольких путях перехода к
паразитическому образу жизни от свободного, однако их многообразие
свидетельствует о вторичном происхождении
явления паразитизма, так как при всем многообразии его форм каждая из них у
паразита обязательно имеет свободноживущую стадию, свидетельствующую о
свободном образе жизни предков [5].
Глава 2. морфологические, экологические, этологические и другие адаптивные приспособления к паразитическому образу жизни у животных.
.1 Морфологические приспособления к паразитизму
Практически у всех эктопаразитов и паразитов, обитающих в
полостных органах, имеются адаптации для прикрепления к телу хозяина. Они встречаются у простейших
(присасывательные диски лямблий), у гельминтов (присоски, шипики, крючья
плоских червей, хитинизированный ротовой аппарат ряда круглых червей) и
паразитических членистоногих (своеобразные конечности) (рис.2.1.1) [8,9].
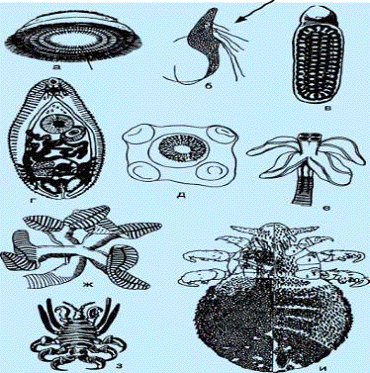
Рисунок 2.1.1 - Органы прикрепления паразитов
а - присасывательные диски у инфузорий; б - присасывательные диски лямблий; в - сложная присоска; г - кутикулярные шипики на коже; д, е, ж, - Крючья и сложные присоски на голове ленточных червей; з - конечности, служащие прикреплением у ракообразного; и - конечности служащие прикреплением у насекомого.
Эндопаразиты, обитающие в полостных органах, имеют покровы, обладающие антиферментными свойствами, быстро регенерирующие либо вообще непроницаемые для ферментов хозяина. Паразиты, живущие в тканях внутренней среды, часто там инкапсулируются (рис. 2.1.2) [2].
Паразиты, питающиеся кровью (представлены в основном
членистоногими), имеют колюще-сосущий ротовой аппарат, а также сильно растяжимый
хитиновый покров, часто разветвленную пищеварительную трубку, антикоагулянтные
свойства слюны и консервантные свойства ферментов пищеварительной системы.
Последние признаки характерны также для червей - гематофагов (рис. 2.1.3)
[6].
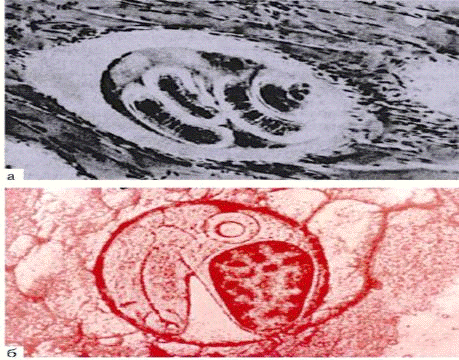
а - личинка трихинеллы, инкапсулированная в мышце; б - личинка кошачьего сосальщика, инцистированная в подкожной жировой клетчатке рыбы
Рисунок 2.1.2 - Паразиты, обитающие в тканях
хозяев
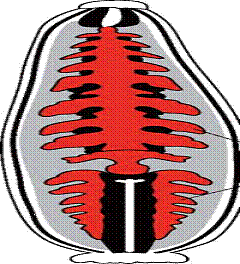
Рисунок 2.1.3 - Слепые выросты кишечника пиявки
Эндопаразиты, активно отыскивающие хозяина, обладают органами ориентации в среде, используемыми для поисков хозяина (светочувствительные глазки, термо- и хеморецепторы), и органами передвижения [9].
Передний конец тела паразитов, внедряющихся в организм
хозяина, снабжен органами проникновения -
специализированными железами, колющими стилетами и т.д. Это касается даже
некоторых простейших, способных проникать в ткани хозяина через неповрежденные
покровы (рис. 2.1.4) [6].
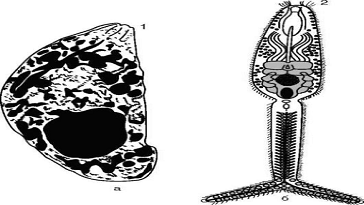
Рисунок 2.1.4 - Железы и стилеты простейших
Также организм червей содержит тегумент и кутикулу, которая
защищает их от внешних воздействий и факторов в оргнанизме с внешне стороны. У
аскариды кутикулярные губы с присосками осуществляют все же прикрепление.
2.2 Молекулярная мимикрия
Иммунная система хозяина может быть «обманута» и, следовательно, иммунной атаки можно избежать путем молекулярной мимикрии - явления, при котором паразит имеет общие антигены с хозяином и пытается сопротивляться иммунным реакциям или ингибировать их.
Конвергентная эволюция тропомиозинов 1 и 2 S. mansoni и их промежуточного хозяина Biomphalaria glabrata, которые имеют ~ 63 % гомологию, является, как предполагают, одной из форм молекулярной мимикрии. Тропомиозин принадлежит к семейству белков, связанных с сократительной активностью актина и миозина. Он повсеместно экспрессируется у беспозвоночных и позвоночных, но существует много изоформ, которые различаются структурно и функционально. Показана относительно высокая степень гомологии и функционального сходства между тропомиозином филогенетически отдаленных видов, включая гельминтов (S. mansoni, O. volvulus, Brugia pahangi) [10].
В плане клинической иммунологии интерес представляет высококонсервативный мышечный белок тропомиозин как кросс-реактивный белок между многими общими аллергенами, включая клещей, креветок и насекомых. Предполагается, что «общая аллергия» к насекомым может развиваться у людей, которые раньше были сенсибилизированы одним или несколькими насекомыми, и что аллергенное сходство, возможно, распространяется на других членистоногих, не являющихся насекомыми.
Особое внимание было уделено гомологичным антигенам у домашних тараканов (Blatta germanica и Periplaneta аmericana) и клещей домашней пыли (Dermatophagoides pteronyssinus и D. farinae), поскольку они играют очень важную роль в заболевании аллергией [8].
В то время как врожденный иммунитет представляет собой самую древнюю систему защиты человека от патогенных микроорганизмов и, по-видимому, является основным и консервативным оружием у паразитов, при анализе сравнительной и функциональной геномики врожденной иммунной системы Anopheles gambiae, одного из видов комаров - промежуточных хозяев малярийных плазмодиев, многие компоненты сигнальных путей иммунной системы оказались очень консервативными у A. gambiae и их очень дальнего родственника Drosophila, несмотря на дивергенцию этих двух насекомых от общего предка около 250 млн. лет назад.
Изучение данных о геномной последовательности P. falciparum, наиболее опасного для жизни из четырех видов Plasmodium, поражающих человека, показало, что геном этого вида состоит из 23 тыс. пар нуклеотидов. Из них значительная часть ассоциируется с иммунным уклонением и взаимодействием в системе паразит-хозяин и почти 2/3генома, по-видимому, уникальны для Plasmodium. Напротив, геном Schistosoma представлен относительно большим числом генов (≈ 15 000), при этом их существенная часть (≈ 65 %) гомологична известным и высококонсервативным генам [3,4].
Примечательно для иммуногенетики выявление многих рецепторов, кодируемых генами паразита, которые являются высогомологичными их хозяину - млекопитающему. К ним относятся инсулиновый, прогестероновый, цитокиновые рецепторы. Гомологии с человеческими цитокиновыми
факторами ингибирования миграции макрофагов (MIF), которые модифицируют активность моноцитов и макрофагов человека, были обнаружены как у P. falciparum, так и у более сложных внеклеточных паразитов Wuchereria bancrofti, Onchocerca уо1уШш и Brugia malayi.
Интересные гомологии в геноме шистосом включают белок Clg комплемента, инсулиноподобный рецептор, инсулиноподобный белок, связывающий факторы роста, и семейство фактора некроза опухоли, так же как гомологии генов, связанных с В- и Т-лимфоцитами, такими как фактор усиления образования пре-В-клеток (PBEF).
Высокая степень гомологии последовательностей и структурные сходства были показаны для лектинов С-типа (C-TLs) человека и гельминтов. Одно из объяснений этого заключается в том, что гормоны хозяина являются ключевым механизмом в поддержании развития и созревания гельминта, включая половое развитие [9].
Разные формы гемоглобинопатии (талассемии, серповидно-клеточная анемия и др.), а также дефицит эритроцитарного фермента глюкозо-6-фос- фатдегидрогеназы обеспечивают устойчивость к малярии. Так, известно, что в эритроцитах людей, гетерозиготных по гену серповидно-клеточной анемии, развитие малярийных плазмодиев происходит быстрее, что приводит к преждевременному образованию гаметоцитов и способствует ускоренному выведению паразитов из крови.
Большое значение имеют генотипические особенности паразита и хозяина. У носителей гемоглобинов S, С, Е редко наблюдается тяжелая клиническая симптоматика тропической малярии. Низкая летальность от тропической малярии отмечена среди лиц с дефицитом глюкозо-6-фосфатдегидрогеназы и носителей генов талассемии. Отсутствие антигена Даффи на эритроцитах коренных жителей западной части Экваториальной Африки делает эту популяцию полностью невосприимчивой к Plasmodium vivax.
Не все рассмотренные примеры можно в настоящее время объяснить. Некоторые известны как эмпирические факты, однако они убеждают в необходимости индивидуальной работы врача с больными, страдающими паразитарными заболеваниями, и делают необходимым дальнейшее изучение факторов восприимчивости человека к паразитам.
Защита хозяина от паразитарной инвазии обеспечивается главным образом иммунными механизмами. Иммунные реакции хозяина возникают в ответ на действие антигенов двух разных типов: входящих в состав организма паразита и выделяемых паразитами в окружающую среду.