Реферат: Антитела: функция, виды, формы взаимодействия с антигенами
Иммуноглобулин класса D практически полностью содержится в сыворотке крови в концентрации около 0,03 г/л (около 0,2% общего количества циркулирующих Ig). IgD имеет молекулярную массу 160 кД и константу седиментации 7S, мономер. Не связывает комплемент. Не проходит через плацентарный барьер. Экспрессируется на предшественниках В-лимфоцитов.
Рецепторные иммуноглобулины, или мембранные, локализуются на цитоплазматической мембране В-лимфоцитов и выполняют
функции их антигенспецифических рецепторов. Имеют те же изотип и специфичность, что и синтезируемые в межклеточную среду антитела. Содержат особый дополнительный M-пептид, благодаря которому молекула рецепторного Ig фиксируется в цитоплазматической мембране иммунокомпетентной клетки.
Нормальные антитела, или естественные, - совокупность Ig сыворотки крови человека различной специфичности, формирующих их базальный уровень. К ним относят изогемагглютинины - антитела к эритроцитарным антигенам групп крови (например, система АВ0), антигенам бактерий кишечной группы, кокков и некоторых вирусов. Эти антитела постоянно образуются в организме без видимой антигенной стимуляции. Отражают готовность макроорганизма к иммунному реагированию, а также свидетельствуют об отдаленном контакте с антигеном.
Моноклональные антитела. Каждый В-лимфоцит и его потомки, образовавшиеся в результате клеточного деления (т.е. клон), способны синтезировать антитела с паратопом строго определенной специфичности. Такие антитела получили название моноклональных. В естественных условиях макроорганизма получить моноклональные антитела практически невозможно, так как на одну и ту же антигенную детерминанту одновременно реагируют до 100 различных клонов В-лимфоцитов, незначительно различающихся антигенной специфичностью. Поэтому в результате иммунизации даже монодетерминантным антигеном мы всегда получаем поликлональныеантитела.
Принципиально получение моноклональных антител выполнимо, если провести предварительную селекцию антителопродуцирующих клеток и их клонирование, т.е. получение необходимых клонов. Однако задача осложняется тем, что число генераций В-лимфоцитов, как и других эукариотических клеток, ограничено. Тем не менее проблема была успешно решена Д. Келлером и Ц. Мильштайном (1975). Исследователи получили гибриды иммунных В-лимфоцитов и миеломных (опухолевых) клеток, которые обладали свойствами антителопродуцента и "бессмертием" раково-трансформированной клетки. Такой вид клеток получил название гибридом. В ходе дальнейшей селекции были отобраны клоны с наивысшей продуктивностью и аффинностью специфических антител. Гибридомные моноклональные антитела нашли широкое применение при создании диагностических и лечебных иммунобиологических препаратов.
Полные и неполные антитела. Такое подразделение основано на способности образовывать в реакции агглютинации или преципитации (in vitro) хорошо различимый глазом результат. Таким свойством обладаютполные антитела. К ним относятся IgМ, а также некоторые IgA и G.
Неполные антитела лишены такой способности, несмотря на то, что они специфически связываются с антигеном - их еще называют неагглютинирующими, непреципитирующими или блокирующими антителами.
4. Антигенность антител
Иммуноглобулин, как и всякий белок, обладает антигенностью и выраженной иммуногенностью. В молекуле Ig различают 4 типа атигенных детерминант: видовые, изотипические, аллотипические и идиотипические. Видовые антигенные детерминанты характерны для Ig всех особей данного вида (например, кролика, собаки, человека). Они определяются строением легкой и тяжелой цепей. По этим детерминантам можно идентифицировать видовую принадлежность антител.
Изотипические антигенные детерминанты являются групповыми. Они локализуются в тяжелой цепи и служат для дифференцировки Ig на 5 изотипов (классов) и множество подклассов.
Аллотипические антигенные детерминанты являются индивидуальными, т.е. присущими конкретному организму. Они располагаются в легкой и тяжелой полипептидных цепях. На основании строения аллотипических детерминант можно различать особи внутри одного вида.
Идиотипические антигенные детерминанты отражают особенности строения антигенсвязывающего центра самой молекулы Ig. Они образованы V-доменами легкой и тяжелой цепей молекулы Ig. Обнаружение идиотипических антигенных детерминант послужило основанием для создания теории идиотип-антиидиотипической регуляции биосинтеза антител.
5. Механизм взаимодействия антитела с антигеном
В процессе взаимодействия с антигеном принимает участиеантигенсвязывающий центр молекулы Ig, или паратоп, который способен связываться со строго определенной антигенной детерминантой. Эта связь осуществляется за счет слабых взаимодействий (ван-дер-ваальсовы силы, водородные связи, злектростатические взаимодействия) и отличается неустойчивостью - образовавшийся иммунный комплекс (ИК) может легко диссоциировать: АГ + АТ ↔ ИК.
Аффинность - сила специфического взаимодействия антитела с антигеном (или энергия их связи). Аффинность определяется степенью стерического (пространственного) соответствия эпитопа и паратопа. Чем больше образуется связей между эпитопом и паратопом, тем выше будут устойчивость и продолжительность жизни образовавшегося иммунного комплекса. Иммунный комплекс, образованный низкоаффинными антителами, чрезвычайно неустойчив и имеет малую продолжительность существования.
Установлено, что в условиях макроорганизма с одной и той же антигенной детерминантой способны одновременно прореагировать и образовать иммунный комплекс около 100 различных клонов антител. Все они будут отличаться структурой антигенсвязывающего центра, специфичностью и аффинностью. Аффинность антител существенно меняется в процессе иммунного ответа в связи с селекцией наиболее специфичных клонов В-лимфоцитов. Наименее аффинными считаются нормальные антитела. По расчетам общее количество различных антигенспецифических клонов В-лимфоцитов достигает 106-107.
Другой характеристикой Ig является авидность. Под этим термином понимают прочность связывания антитела и антигена. Эта характеристика определяется аффинностью Ig и числом антигенсвязывающих центров. Наибольшей авидностью обладают антитела класса М, так как они имеют 10 антигенсвязывающих центров.
Эффективность взаимодействия антитела с антигеном существенно зависит от условий, в которых происходит реакция, прежде всего от pH среды, осмотической плотности, солевого состава и температура среды. Оптимальными для реакции антиген-антитело являются физиологические условия внутренней среды макроорганизма: близкая к нейтральной реакция среды, присутствие фосфат-, карбонат-, хлорид - и ацетат-ионов, осмолярность физиологического раствора (концентрация раствора 0,15 М), а также температура 36-37°С.
6. Свойства антител
Благодаря уникальной способности специфически связываться с антигенными детерминантами антитела выполняют в организме ряд важнейших функций.
К прямым эффектам антител относится нейтрализация - связывание и блокирование паратопом иммуноглобулина активного центра биологически активной молекулы, например токсина, рецептора, лекарственного препарата и пр. Эффект имеет обратимый характер в случае распада иммунного комплекса. На этом принципе основан механизм действия антитоксических, противовирусных и многих других лечебных иммунных сывороток.
Другим прямым эффектом является энзиматическое действие антител. Благодаря реликтовой протеазной или нуклеазной активности иммуноглобулины способны вызывать деструкцию молекулы антигена (например, расщепление отдельных пептидов или ДНК). Запуск системы комплемента по классическому пути также представляет собой результат ферментолиза.
В большинстве случаев взаимодействие антител с антигеном в организме не влечет за собой его структурную или функциональную модификацию. Прочно связываясь с эпитопом, антитела маркируют молекулу антигена - обозначают его как мишень для других факторов иммунитета (фагоцитоз, лизис).
К непрямым эффектам относятся:
индукция комплементопосредованного лизиса чужеродных клеток (см. раздел 9.2.3.3), наилучшими свойствами обладает IgM (IgM > IgG3 > IgG1);
запуск антителозависимой клеточно-опосредованной цитотоксичности АЗКЦТ;
индукция гиперчувствительности немедленного, или I, типа;
опосредование иммунного фагоцитоза.
Клеточно-опосредованные эффекты иммуноглобулинов реализуются благодаря экспрессии на мембране иммунокомпетентных клеток рецепторов к Fc-фрагменту молекулы иммуноглобулина (FcR). Эти рецепторы являются трансмембранными белковыми молекулами и различаются по специфичности к определенному изотипу тяжелой цепи молекулы Ig. Различают также высокоаффинные и низкоаффинные FcR. Первые могут взаимодействовать с интактной молекулой иммуноглобулина. В некоторых случаях она используется как ко-рецепторный фактор (базофилы, тучные клетки). Низкоаффинные FcRсвязываются уже с иммунным комплексом, их называют непрямыми иммунорецепторами.
Помимо эффекторных свойств, антитела являются активными регуляторами иммунореактивности. Так, Ig являются антигенспецифическими рецепторами В-лимфоцитов.
Специфическое связывание эпитопов специфическими антителами может блокировать развитие как гуморального, так и клеточного иммунного ответа. Этот эффект используется в клинической практике, например, для профилактики гемолитической болезни новорожденных в результате резус-конфликта. Антитела, специфичные к идиотипическим антигенным детерминантам Ig, могут управлять силой антительного иммунного реагирования.
7. Генетика иммуноглобулинов
Для структуры молекул Ig характерно уникальное генетическое кодирование. Методами молекулярной генетики было доказано, что структура молекулы Ig контролируется большим числом генов, которые имеют фрагментарную организацию, образуют три группы, располагаются в трех различных хромосомах и наследуются независимо.
Первая группа генов кодирует первичную структуру легкой цепи λ-типа, вторая - легкой цепи κ-типа, а третья - всех типов тяжелых цепей (α, δ, ε, γ и μ). Гены, относящиеся к каждой группе, находятся на соответствующей хромосоме в непосредственной близости друг от друга, располагаются последовательно и разделены интронами.
Участок ДНК, кодирующий строение легкой цепи λ-типа, содержит 2 V-сегмента (контролируют структуру
V-доменов) и 4 C-сегмента (контролируют структуру C-доменов). Между C -
и V-сегментами располагается J-сегмент (от англ. join - соединяющий).
Легкая цепь κ-типа кодируется несколькими сотнями
V-сегментов ДНК, 4 J-сегментами и одним C-сегментом. Группа генов,
контролирующая структуру тяжелых цепей, имеет еще более сложное строение.
Наряду с V-, C - и J - сегментами ДНК
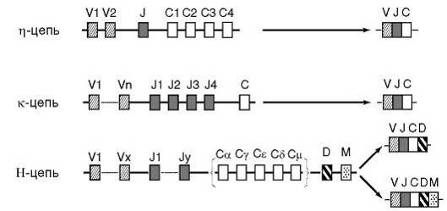
Рис. 3. Схема строения генов иммуноглобулинов
(пояснение в тексте)
в их состав входят 20 D-сегментов (от англ. divercity - разнообразие). Кроме того, имеется M-сегмент, который кодирует биосинтез мембраноассоциированного участка молекулы рецепторного Ig.
Созревание пре-В-лимфоцитов сопровождается перестройками в их генетическом аппарате. Происходят произвольное сближение отдельных фрагментов ДНК и сборка в пределах соответствующих хромосом единых функциональных генов. Этот процесс называется сплайсинг (от англ. splicing - сращивание, состыковывание). Пропущенные участки ДНК исключаются из дальнейшего считывания. С функциональных генов в дальнейшем транскрибируется про-мРНК, а затем окончательная мРНК, кодирующая первичную аминокислотную последовательность L - и H-цепей молекулы Ig. Параллельно со сплайсингом в отдельных участках V-сегментов генов иммуноглобулинов могут происходить точечные мутации и нематричная достройка олигонуклеотидов. Эти участки ДНК получили название гипермутабельных областей.
Сплайсинг и мутационный процесс в генах Ig носят случайный характер. Они происходят в каждом лимфоците независимо друг от друга и уникальны, что в бесконечное количество раз повышает разнообразие V-доменов и в конечном счете структуры паратопов и идиотипических антигенных детерминант молекулы Ig. Поэтому в организме всегда существуют или в любой момент могут появиться В-лимфоциты, специфичные практически к любому антигену. Этот тезис составляет основу молекулярно-генетической теории
происхождения многообразия специфичностей антител, разработанной С. Тонегавой (1983).
В процессе первичного иммунного ответа размножение В-лимфоцитов также сопровождается рекомбинационными перестройками в пределах иммуноглобулиновых генов, но уже в пределах С-сегментов. Это проявляется последовательной сменой класса Ig: на ранних этапах дифференцировки В-лимфоциты синтезируют Ig классов М и D, на более поздних - классов G, A или E (редко).
8. Динамика антителопродукции
Иммунная система реагирует на появление во внутренней среде макроорганизма антигена усилением биосинтеза специфических антител. Это достигается размножением клонов антигенспецифических клеток-антителопродуцентов. При этом антиген выступает в роли как пускового, так и селектирующего фактора: преимущественно активируются клоны с наивысшей специфичностью, т.е. наибольшей аффинностью рецепторных молекул Ig. Параллельно с размножением идет процесс дифференцировки В-лимфоцитов. Наблюдаются перестройка в геноме клеток и переключение их биосинтеза с крупной высокоавидной молекулы IgM на более легкие и экономичные высокоаффинные IgG или IgA.
Антителопродукция в ответ на антигенный стимул имеет характерную динамику. Ее можно проследить на примере сывороточных Ig (рис.4). Выделяют латентную (индуктивную), логарифмическую, стационарную фазы и фазу снижения. В латентную фазу антителопродукция практически не изменяется и остается на базальном уровне.
В этот период происходят переработка и представление антигена иммунокомпетентным клеткам и запуск пролиферации антигенспецифических клонов клетокантителопродуцентов. Ввиду того что клетки делятся дихотомически (т.е. надвое), прирост их количества происходит в логарифмической зависимости и поэтому после первых циклов деления оно изменяется незначительно.
Параллельно происходят дифференцировка пре-В-лимфоцитов в
зрелые формы и плазматические клетки и переключение синтезируемых изотипов Ig. Во
времялогарифмической фазы наблюдается интенсивный прирост количества
антигенспецифических В-лимфоцитов, что находит отражение в существенном
нарастании титров специфических антител. Встационарной фазе количество
специфических антител и синтезирующих их клеток достигает максимума и
стабилизируется. Освобождение макроорганизма от антигена устраняет антигенный
стимул, поэтому вфазе снижения наблюдается постепенное уменьшение
количества клонов специфических антителопродуцентов и титров соответствующих
антител.
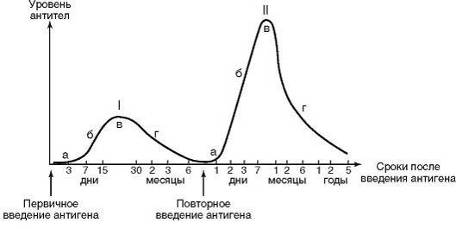
Рис. 4. Динамика антителообразования при первичном (I) и
вторичном (II) иммунном ответах. Фазы антителообразования: а - латентная; б -
логарифмического роста; в - стационарная; г - снижения
Динамика антителообразования существенно зависит от первичности или вторичности контакта с антигеном. При первичном контакте с антигеном развивается первичный иммунный ответ. Для него характерны длительные латентная и логарифмическая (7-15 сут) фазы. Первые диагностически значимые титры специфических антител регистрируются на 10-14-е сутки от момента иммунизации. Стационарная фаза продолжается 15-30 сут, а фаза снижения - 1-6 мес.