Реферат: Антитела: функция, виды, формы взаимодействия с антигенами
Антитела: функция, виды, формы взаимодействия с антигенами
Федеральное государственное бюджетное образовательное учреждение
Высшего профессионального образования
РЕФЕРАТ
на тему:
"Антитела: функция, виды, формы взаимодействия с
антигенами"
г.
Содержание
Введение
1. Природа антител
2. Молекулярное строение антител
3. Структурно-функциональные особенности иммуноглобулинов различных классов
4. Антигенность антител
5. Механизм взаимодействия антитела с антигеном
6. Свойства антител
7. Генетика иммуноглобулинов
8. Динамика антителопродукции
9. Теории разнообразия антител
Заключение
Библиографический список
Введение
Термин "антитело" был введён в употребление в конце XIX века. В 1890 году Беринг (Behring) и Китасато (Kitasato) провели эксперименты, в которых они изучали на морских свинках действие дифтерийного и столбнячного токсинов. Они вводили животным сублетальную дозу токсина, через некоторое время брали у них сыворотку и вводили её вместе с летальной дозой токсина другим животным, в результате чего животные не погибали. Был сделан вывод, что после иммунизации токсином в крови животных появляется вещество, способное нейтрализовать его и тем самым предотвратить заболевание. Данное вещество получило название антитоксина, а затем был введён более общий термин - антитело; вещества вызывающие образование антител стали называть антигенами.
Только в 1939 году Тизелиус (Tiselius) и Кэбет (Kabat) показали, что антитела содержатся в определённой фракции белков сыворотки. Они иммунизировали животное овальбумином и из полученной сыворотки взяли две пробы, в одну из них был добавлен овальбумин и образовавшийся осадок (комплекс антитело-овальбумин) удалили. Электрофорез выявил, что в пробе куда добавлялся овальбумин, содержание г-глобулинов значительно ниже чем в другой пробе. Это указывало на то, что антитела являются г-глобулинами. Чтобы отличить их от других белков, содержащихся в этой фракции глобулинов, антитела были названы иммуноглобулинами. Сейчас известно, что антитела обнаруживаются в значительных количествах также во фракциях б - и в-глобулинов.
Структура антител была установлена в ходе разнообразных экспериментов. В основном они заключались в том, что антитела обрабатывались протеолитическими ферментами (папаин, пепсин), и подвергались алкилированию и восстановлению меркаптоэтанолом. Затем исследовались свойства полученных фрагментов: определялась их молекулярная масса (хроматографией), четвертичная структура (рентгеноструктурным анализом), способность связываться с антигеном и т.п. Также использовались антитела к данным фрагментам: выяснялось, могут ли антитела к одному типу фрагментов связываться с фрагментами другого типа. На основе полученных данных была построена описываемая ниже модель молекулы антител.
антитело антиген иммуноглобулин молекулярный
1. Природа антител
Одной из филогенетически наиболее древних форм иммунной защиты является биосинтез антител - белков, специфически реагирующих с антигенами. Антитела относятся преимущественно к γ-глобулиновой фракции белков плазмы крови, на долю которых приходится 15-25% ее белкового содержания, что составляет примерно 10-20 г/л. Поэтому антитела получили название иммуноглобулинов, и их обозначают символом Ig. Следовательно антитела - это γ-глобулины плазмы крови, способные специфически связываться с антигеном и участвовать во многих иммунных реакциях.
Антитела синтезируются В-лимфоцитами и их потомками - плазматическими клетками и в циркулирующей форме, и в виде рецепторных молекул на иммунокомпетентных клетках. Циркулирующие антитела подразделяются на сывороточные и секреторные. К антителам могут быть также отнесены белки Бенс-Джонса, которые являются фрагментами молекулы Ig (его легкая цепь) и синтезируются в избытке при миеломной болезни.
Строение и функцию антител изучали многие видные ученые: П.
Эрлих (1885) предложил первую теорию гуморального иммунитета, Э. Беринг и С.
Китазато (1887) получили первые антитоксические сыворотки к дифтерийному и
столбнячному токсинам, А. Безредка (1923) разработал метод безопасного введения
пациентам лечебных иммунных сывороток. Большая заслуга в расшифровке молекулярного
строения Ig принадлежит Д. Эдельману и Р. Портеру (1959), а разгадка
многообразия антител - Ф. Бернету (1953) и С. Тонегаве (1983).
2. Молекулярное строение антител
Иммуноглобулины - это белки сыворотки крови. Они секретируются плазматическими клетками в ответ на антиген. Молекулы Ig имеют универсальное строение (рис.1). Они состоят из 2 пар полипептидных цепей: двух тяжелых (550-660 аминокислотных остатков, молекулярная масса - 50 кД) и двух легких (220 аминокислотных остатков, молекулярная масса - 20-25 кД). Обозначают их как H - (от англ. heavy - тяжелый) и L - (от англ. light - легкий) цепи. Тяжелые и легкие цепи связаны между собой попарно дисульфидными связями (-S-S-). Между тяжелыми цепями также есть дисульфидная связь - это так называемый шарнирный участок. Такой тип межпептидного соединения позволяет молекуле Ig легко менять свою конформацию в зависимости от окружающих условий и состояния. Область шарнирного участка ответственна за взаимодействие с первым компонентом комплемента (С1) и его активацию по классическому пути.
Различают структурные варианты легких и тяжелых полипептидных
цепей молекулы Ig. Легкие цепи бывают 2 типов: κ и λ (каппа и лямбда). Тяжелых цепей известно 5 типов: α, γ, μ, ε и δ (альфа, гамма, мю,
эпсилон и дельта). Среди многообразия цепей α-типа выделяют α1 - и а2-подтипы, μ-цепей - μ1 и μ2, γ-цепей - γ1-, γ2-, γ3 - и γ4-подтипы.
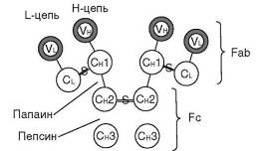
Рис. 1. Схема строения молекулы иммуноглобулина класса G: V - вариабельный домен; C - константный домен; S - дисульфидная связь шарнирного участка
Вторичная структура полипептидных цепей молекулы Ig имеет доменное строение - ее отдельные участки свернуты в глобулы (домены), стабилизированные внутренней дисульфидной связью. Таких доменов в составе тяжелой цепи Ig бывает 4-5, в легкой - 2. Каждый домен состоит примерно из 110 аминокислотных остатков.
Домены различаются по постоянству аминокислотного состава. Выделяют С-домены (от англ. constant - постоянный) с относительно постоянной структурой и V-домены (от англ. variable - изменчивый) с переменной структурой. В составе легкой цепи есть по одному V - и С-домену, а в тяжелой - один V - и 3-4 С-домена. Примечательно, что не весь вариабельный домен изменчив по своему аминокислотному составу, а лишь его незначительная часть - гипервариабельная область, на долю которой приходится около 25%.
Вариабельные домены легкой и тяжелой цепей совместно образуют участок, который специфически связывается с антигеном, - антигенсвязывающий центр, или паратоп. Гипервариабельные области тяжелой и легкой цепей определяют индивидуальные особенности строения антигенсвязывающего центра для каждого клона Ig и многообразие их специфичностей.
Обработка ферментами молекулы Ig приводит к ее гидролизу на определенные фрагменты. Так, папаин разрывает молекулу выше шарнирного участка и ведет к образованию трех фрагментов (см. рис.1). Два из них способны специфически связываться с антигеном. Они состоят из цельной легкой цепи и участка тяжелой (V - и C-домен), и в их структуру входят антигенсвязывающие участки. Эти фрагменты получили название Fab (от англ. - фрагмент, связывающийся с антигеном). Третий фрагмент, способный образовывать кристаллы, получил название Fc (от англ. - фрагмент кристаллизующийся). Он ответствен за связывание с рецепторами на мембране клеток макроорганизма (Fc-рецепторы) и некоторыми микробными суперантигенами (например, белком А стафилококка). Пепсин расщепляет молекулу Ig ниже шарнирного участка и ведет к образованию 2 фрагментов: Fc и двух сочлененных Fab, или F (ab) 2. В структуре молекул Ig обнаруживают дополнительные полипептидные цепи. Так, полимерные молекулы IgM, IgA содержат J-пептид (от англ. join - соединяю), который объединяет отдельные мономеры в единое макромолекулярное образование (см. раздел 11.1.3). Молекулы секреторных Ig обладают S-пептидом (от англ. secret - секрет). Это так называемый секреторный компонент. Его молекулярная масса составляет 71 кД, он является β-глобулином и предохраняет молекулу Ig в секрете слизистых оболочек от ферментативного расщепления. Рецепторный Ig, локализующийся на цитоплазматической мембране антителопродуцирующих клеток, имеет дополнительный гидрофобный трансмембранный М-пептид (от англ. membrane - мембрана). Он прочно удерживает молекулу Ig в липидном бислое цитоплазматической мембраны и проводит рецепторный сигнал через цитоплазматическую мембрану внутрь клетки. J - и M-пептиды присоединяются к молекуле Ig в процессе ее биосинтеза. S-пептид является продуктом эпителиальной клетки - он присоединяется к J-пептиду полимерной молекулы Ig при ее транслокации через эпителиальную клетку.
3. Структурно-функциональные особенности иммуноглобулинов различных классов
В зависимости от особенностей молекулярного строения тяжелой
цепи, а следовательно, наличия изотипических, или групповых, антигенных
детерминант различают 5 классов или изотипов Ig (рис.2). Молекулы, содержащие
тяжелую цепь α-типа, относят к изотипу, или классу A
(сокращенно IgA), δ-типа - IgD, ε-типа - IgE, γ-типа - IgG и μ-типа - IgM. Различают также подклассы Ig.
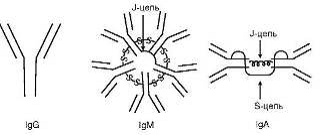
Рис. 2. Схема строения иммуноглобулинов различных
классов (пояснение в тексте)
Для каждого изотипа Ig характерны свои особенности. В частности, Ig D, E и G имеют мономерное строение, IgM практически всегда является пентамером, а молекула IgA может быть моно-, ди - и тримером. Наиболее характерные черты различных изотипов Ig приведены в табл.1.
Таблица 1. Основные характеристики иммуноглобулинов человека
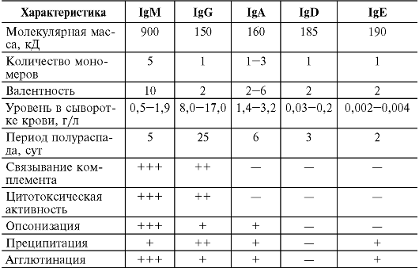
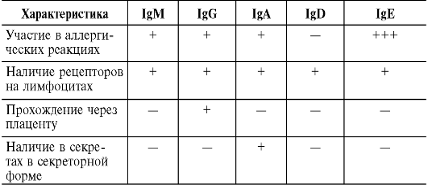
Иммуноглобулин класса G составляет основную массу Ig сыворотки крови, на его долю приходится 70-80% всех циркулирующих Ig, при этом 50% содержится в тканевой жидкости. Среднее содержание IgG в сыворотке крови здорового взрослого человека - 12 г/л, что достигается к 7-10-летнему возрасту. Период полураспада IgG 21 день.- мономер, имеет 2 антигенсвязывающих центра, может связать 2 молекулы антигена подряд. Молекулярная масса около 160 кД, константа седиментации 7S. Синтезируется зрелыми В-лимфоцитами (Βγ) и плазматическими клетками. Хорошо определяется в сыворотке крови на пике первичного и при вторичном иммунном ответе. Обладает высокой аффинностью.
Различают подтипы G1-G4. IgG1 и G3 связывают комплемент, причем G3 активнее. IgG4 подобно IgE обладает цитофильностью (тропностью, или сродством, к тучным клеткам и базофилам) и участвует в развитии аллергической реакции I типа.
Легко проходит через плацентарный барьер и обеспечивает гуморальный иммунитет новорожденного в первые 3-4 мес после рождения, в том числе обнаруживается в молоке. IgG обеспечивает нейтрализацию и маркирование антигена, осуществляет запуск комплементопосредованного цитолиза и АЗКЦТ.
Иммуноглобулин класса M - наиболее крупная молекула из всех Ig. Это пентамер, который имеет 10 антигенсвязывающих центров. Его молекулярная масса около 900 кД, константа седиментации 19S. Различают подтипы М1 и М2. Тяжелые цепи молекулы IgM, в отличие от других изотипов, построены из 5 доменов. Являясь полимерной молекулой, содержит J-цепь. Период полураспада 5 дней.
На его долю приходится 5-10% всех циркулирующих Ig. Среднее содержание IgM в сыворотке крови здорового взрослого человека около 1 г/л. Этого уровня человек достигает уже к 2-4-летнему возрасту. IgM филогенетически наиболее древний иммуноглобулин. Образуется в начале первичного иммунного ответа.
Обладает высокой авидностью, наиболее эффективный активатор комплемента по классическому пути. Большая часть нормальных антител и изоагглютининов относится к IgM. Не проходит через плаценту. Обнаружение высоких титров специфических антител изотипа M в сыворотке крови новорожденного указывает на бывшую внутриутробную инфекцию или дефект плаценты. IgM обеспечивает нейтрализацию и маркирование антигена, осуществляет запуск комплементопосредованного цитолиза и АЗКЦТ. Является маркером острого инфекционного процесса.
Иммуноглобулин класса A существует в сывороточной и секреторной формах. Около 60% всех IgA содержится в секретах слизистых оболочек.
Сывороточный IgA. На его долю приходится около 10-15% всех циркулирующих Ig. В сыворотке крови здорового взрослого человека содержится около 2,5 г/л IgA, максимум достигается к 10 - летнему возрасту. Период полураспада 6 дней.- мономер, имеет 2 антигенсвязывающих центра, молекулярную массу около 170 кД и константу седиментации 7S. Различают подтипы A1 и A2. Синтезируется зрелыми иммунными В-лимфоцитами (Βα) и плазматическими клетками. Хорошо определяется в сыворотке крови на пике первичного и при вторичном иммунном ответе. Обладает высокой аффинностью. Не связывает комплемент. Не проходит через плацентарный барьер. IgA обеспечивает нейтрализацию и маркирование антигена, осуществляет запуск АЗКЦТ.
Секреторный IgA (sIgA) существует в полимерной форме в виде диили тримера (4 - или 6-валентный), несет 4 или 6 паратопов и содержит J - и S-пептиды. Молекулярная масса 350 кД и выше, константа седиментации 13S и выше.
Синтезируется В1-лимфоцитами, плазматическими клетками и, возможно, В1-лимфоцитами в пределах слизистых оболочек и выделяется в их секреты. Объем продукции может достигать 5 г в сутки. Пул sIgA считается самым многочисленным в организме - его количество превышает суммарное содержание IgM и IgG. В сыворотке крови sIgA не обнаруживается.
Формирование четвертичной структуры молекулы sIgA происходит при ее транслокации через эпителиальную клетку. На базальной и латеральной поверхности эпителиальная клетка несет рецептор к J-цепи полимерной молекулы Ig (JR). Присоединяясь к рецептору, IgA эндоцитируется клеткой в виде везикулы и переносится к апикальной поверхности эпителиоцита, где JR подвергается ферментативному расщеплению. В результате IgA высвобождается в слизистый секрет просвета органа уже в секреторной форме, так как оставшийся прикрепленным к молекуле Ig фрагмент JR становится S-цепью.
Секреторная форма IgA - основной фактор специфического гуморального местного иммунитета слизистых оболочек желудочнокишечного и респираторного тракта, мочеполовой системы. Благодаря S-цепи он устойчив к действию протеаз. sIgA не активирует комплемент, но эффективно связывается с антигенами, нейтрализует их и препятствует адгезии микробов на эпителиальных клетках.
Иммуноглобулин класса E называют также реагином. Содержание в сыворотке крови крайне невысоко - примерно 0,00025 г/л. Молекулярная масса около 190 кД, константа седиментации примерно 8S, мономер. На его долю приходится около 0,002% всех циркулирующих Ig. Этот уровень достигается к 10-15 годам жизни.
Синтезируется зрелыми В-лимфоцитами (Βε) и плазматическими клетками преимущественно в лимфоидной ткани бронхолегочного дерева и желудочно-кишечного тракта. Не связывает комплемент. Не проходит через плацентарный барьер. Обладает выраженной цитофильностью - тропностью к тучным клеткам и базофилам. Участвует в развитии гиперчувствительности немедленного типа - реакция I типа.