Материал: 9. Біофізика клітин

Коефіцієнт дифузії ліпідів дуже великий, при цьому ліпіди, що пе-ребувають поблизу молекул білків у межах двох-трьох діаметрів ліпід-ної молекули, дифундують з дещо меншою швидкістю, ніж вільні ліпі-ди. Молекули білків також досить швидко переміщуються, хоча й повільніше, ніж ліпіди.
Порівняно з латеральною дифузією «фліп-флоп» переходи відбу-ваються набагато рідше. Середній час між переходами молекули фос-фоліпіду з однієї поверхні мембрани на іншу не перевищує однієї годи-ни. Молекули білків майже не здійснюють таких переходів.
Істотні відмінності між швидкостями латеральної дифузії і «фліп-флоп» переходів дуже важливі. Така велика швидкість латеральної ди-фузії забезпечує високу швидкість хімічних реакцій, що відбуваються на мембранах, а мала швидкість «фліп-флоп» переходів сприяє збере-женню асиметрії мембран.
126
Завдяки поєднанню швидкої дифузії в площині мембрани з повіль-ною дифузією упоперек мембрани підтримується асиметрія (анізотро-пія) розміщення молекул ліпідів та білків, певна орієнтація білків-ферментів упоперек мембрани. Це має важливе значення для напрямле-ного перенесення речовин.
-
організмі хребетних, а також багатьох безхребетних тварин існу-ють базальні мембрани – стінки, навколишні групи клітин або рідше окремі клітини, які часто розміщуються між епітеліальною і сполучною тканинами в стінках кровоносних судин. Вони забезпечують механічні зв’язки між клітинами, відіграють роль фільтра, особливо в стінках кро-воносних судин, де регулюють проникнення речовин з крові в тканини. Завдяки ньому в мозок не проникає багато речовин, зокрема цілий ряд лікарських речовин.
Експериментальні дослідження показують [95], що мембрана міс-тить певні типи рухомих структурних дефектів – кінків, які є наслідком конформаційних перебудов вуглеводневих ланцюгів. Унаслідок малої величини (близько 3,5 ккал/моль) енергетичного бар’єра для обертання навколо одиничного С–С-зв’язку жирно-
|
кислотних радикалів, велика ймовірність |
|
|
|
|
|
трансгошізомеризації (гошконформація ви- |
|
мм |
|
|
|
никає при повороті навколо С–С-зв’язку |
|
0,127 |
|
|
|
|
|
|
||
|
на ±120° відносно транс-конформації). |
|
|
|
|
|
Якщо витягнуту молекулу повернути нав- |
|
|
|
|
|
коло С–С-зв’язку на кут 120°, а потім нав- |
|
|
|
|
|
коло іншого С-С-зв’язку, то вона розміс- |
|
0,15 мм |
|
|
|
титься через одну від початкової, на кут |
|
|
||
|
а |
б |
|
||
|
мінус 120°, то вийде конформація, названа |
|
|||
|
Рис. 3.11. Схематичне зображення |
|
|||
|
простим кінком (рис. 3.11). |
|
вуглеводневих ланцюгів |
|
|
|
|
в трансконфігурації (а), |
|
||
|
При цьому лінійна молекула виявля- |
|
|
||
|
|
трансгошконфігурації (б) |
|
||
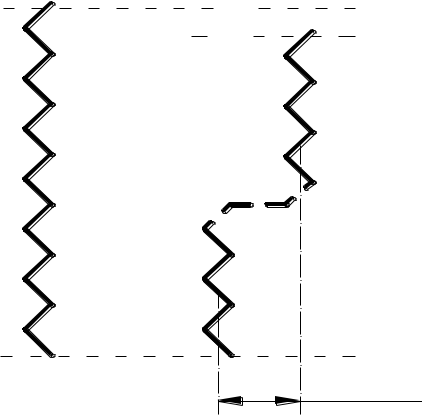
ється немовби двічі переламаною. Синхронні трансгошперетворення можна подати як рух кінків уздовж ланцюга. Таким чином, наявні у вуг-
127
леводневій частині мембрани і кінки утворюють невеликі рухомі «ки-шеньки» або «бульбашки» вільного простору різного розміру молекул, що транспортуються з водної фази, можуть перейти у порожнину кінка і дифундувати через мембрану разом з рухомим кінком. Наявність у вуг-леводневих ланцюгах кінків, подвійних цисзв’язків та інших особливос-тей визначають рухливість (рідинність або плинність) ліпідного бішару за нормальних умов. При цьому площа ефективного поперечного пере-різу ланцюгів збільшується до 0,5 нм2 (за повної трансконфігурації мі-німальне її значення становить 0,19 нм2).
3.4.3. Фізичний стан і фазові переходи ліпідів у мембранах
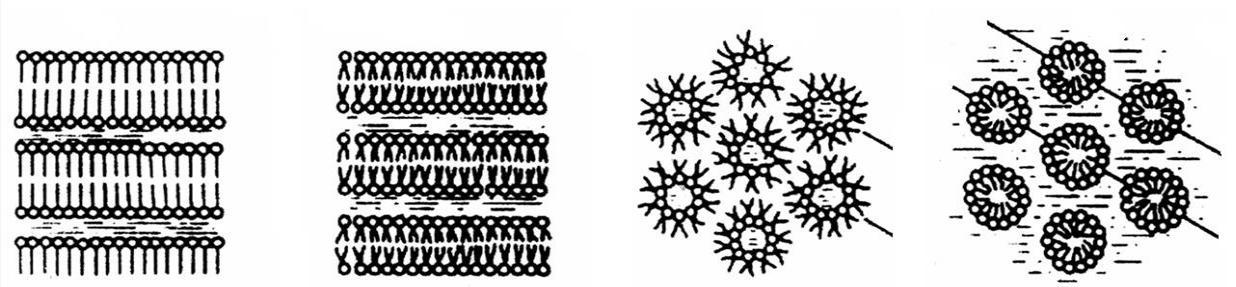
Суміші ліпідів з водою мають властивості поліморфізму. Це може бути ламелярна фаза гелю, ламелярна рідкокристалічна фаза, гексаго-нальна фаза типу II, кожна з яких буде залежати від концентрації ліпі-дів, температури, тиску, ліпідного складу, іонної сили та кислотності (рис. 3.12).
За нормальних фізіологічних умов мембрани перебувають у рідко-му стані, проте на відміну від рідин вони мають упорядковану просто-рову структуру. Завдяки таким властивостям стан мембран називається рідкокристалічним.
-
Ламелярна рідкокристалічна фаза Lα. Для цієї фази характерне впорядковане розміщення шаруватих структур за значної невпорядко-ваності ацильних ланцюгів молекул. Саме в цій фазі перебуває основна маса ліпідів у біомембранах.
-
Ламелярна гелева фаза Lβ. Зі зниженням температури мембрани переходять з рідкокристалічного стану в твердокристалічний (гель-стан). За такого переходу зберігається загальна структура мембрани, але
порядок у системі ще більше зростає. Якщо в рідкому стані площа мем-брани, що припадає на одну молекулу ліпіду, становить 0,58 нм2, то в гель-стані ця величина зменшується до 0,48 нм2. Товщина мембрани у разі переходу в твердокристалічний стан збільшується, але за рахунок
128
зменшення площі об’єм мембрани в цілому зменшується. Молекули упаковані щільніше (на молекулу припадає менша площа поверхні), ацильні ланцюги більш упорядковані і перебувають повністю в транс-конфігурації. Щільність і товщина бішару у фазі гелю більші, ніж у рід-кокристалічній фазі (молекули максимально витягнуті).
Lβ Lα HІІ НІ
а б в г
Рис.3.12. Схематичне зображення різних фаз водно-ліпідних систем:
-
– ламелярна гелева фаза; б – ламелярна рідкокристалічна фаза;
-
– гексагональна фаза типу II; г – гексагональна фаза типу I
-
Гексагональна фаза I (НІ). Ліпідні молекули формують циліндро-ві структури, поверхня яких утворена полярними головками, що контак-тують з водою. При цьому циліндри паковані з утворенням гексаго-нальних ґраток.
-
Гексагональна фаза II (НІІ). Ліпіди також утворюють циліндри, але полярні головки ліпідів обернені всередину циліндрів, де міститься вода. Паковання циліндрів також гексагональне.
Фазовий стан, а головне в’язкість ліпідного бішару мембран, впливає на каталітичну активність мембранних ферментів, на про-никність мембран, а отже, на процеси обміну речовин у клітинах. Чим більша рухливість молекул фосфоліпідів, тим вища в’язкість мембран і тим краща проникність для дифундувальних речовин. Під час переходу мембранного бішару в стан гелю швидкість латеральної
дифузії фосфоліпідів зменшується більш ніж на два порядки (D < 104 см2/с).
Рухливість ліпідних молекул в обох фазових станах істотно різ-няться. У гель-стані ліпіди здатні здійснювати тільки сумісні коливання
129
або обертальні рухи. В рідкому стані ліпідні хвости мають набагато більшу свободу, особливо велика їх рухливість усередині мембрани.
Під час фазового переходу збільшується проникність мембрани для іонів і низькомолекулярних сполук, здатних проходити крізь такі пори. Фазовий перехід у мембранах відбувається не миттєво, а протягом де-якого температурного інтервалу. Температурою фазового переходу на-зивають температуру, за якої одна половина мембранних ліпідів пере-буває в рідкокристалічному стані, а друга – у твердокристалічному.
Таким чином, для нормального функціонування мембрана має бу-ти в рідкокристалічному стані. За досить низьких температур ліпідний бішар перебуває в квазікристалічному стані (гель-стані). У разі підви-щення температури спостерігається перехід «гель–рідкий кристал». Зміна властивостей ліпідів відбувається у вузькому температурному інтервалі, що характерний для фазового переходу, який спостерігається під час плавлення твердого тіла. Температура фазового переходу зни-жується з підвищенням ступеня ненасиченості зв’язків між вуглецеви-ми атомами вуглеводневих хвостів ліпідних молекул. Так, температура фазового переходу «гель–рідкий кристал» для мембран з ненасичених ліпідів може становити мінус 20 °С, а для насичених ліпідів – плюс 60 °С. Тому в разі тривалого зниження температури мікроорганізмів, рослинних і тваринних клітин спостерігається адаптаційна зміна хіміч-ного складу мембран для зниження температури фазового переходу. Передбачається, що на первинний механізм кріогенних руйнувань біо-мембран впливає фазовий перехід у гель-стан. Дослідження ролі холе-стеролу в біомембрані показали, що в рідкокристалічному стані суміші ліпідів холестерол обмежує конформаційну рухливість фосфоліпідних ланцюгів. У стані гелю він затруднює оптимальне паковання ланцюгів
-
повну трансконфігурацію, знижуючи сили тяжіння між вуглеводне-вими ланцюгами ліпідів. У результаті суміші фосфоліпід-холестерол за впорядкованістю займають проміжне положення між станами гелів і рідкокристалічних систем чистого фосфоліпіду. Таким чином, наяв-
130
ність холестеролу може зменшувати зміни в мембрані, які супроводжу-ють фазовий перехід.
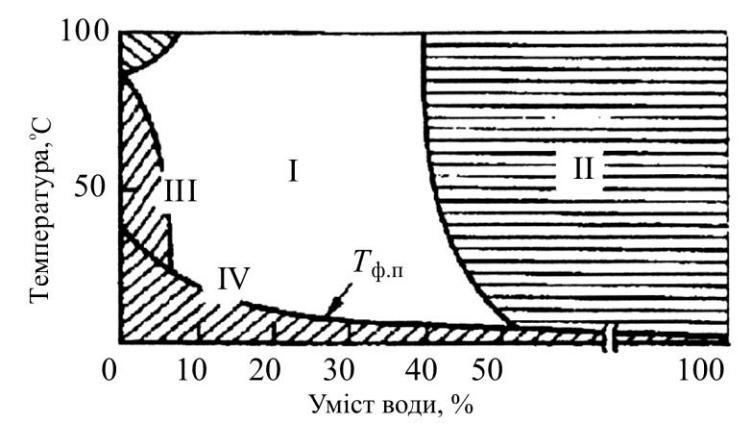
Фазові переходи типу «гель–рідкий кристал» відбуваються за тем-ператури Тф.п (рис. 3.13), величина якої залежить від умісту води в сис-темі.
|
Так, Тф.п досягає міні- |
|
|
|||||
|
муму, коли загальний вміст |
|
|
|||||
|
води перевищує ту кіль- |
|
|
|||||
|
кість, яку можуть зв’я- |
|
|
|||||
|
зувати ліпіди (концен- |
|
|
|||||
|
трація ліпідів мінімальна). |
|
|
|||||
|
Проте за температури ви- |
|
|
|||||
|
щої за |
Тф.п і нестачі |
води |
Рис. 3.13. Фазова діаграма суміші яєчного лецитіну |
|
|||
|
ліпіди |
можуть перебувати |
з водою: I – рідкокристалічний стан, бішар; |
|
||||
|
II – двофазна система: вода, бішар; III – ділянка |
|
||||||
|
у впорядкованому |
стані. |
|
|||||
|
існування гексагональних структур; IV – гель; |
|
||||||
|
Крім переходів типу «гель– |
Тф.п – крива температури фазового переходу |
|
|||||
рідкий кристал», деякі ліпіди (фосфатидна кислота, фосфотиділсерин) можуть зазнавати перетворення, що приводять до утворення гексаго-нальних структур. Підвищення температури, пониження гідратації бі-шару, збільшення ненасиченості жирнокислотних ланцюгів, висока іон-на сила за лужного рН-чинника, які сприяють утворенню в ньому гексагональних структур. Перехід окремих ділянок у гексагональну фа-зу призводить до порушення цілісності мембрани, формування каналів проникності тощо.
Живі організми, що мешкають у різних кліматичних умовах, мають різне співвідношення насичених та ненасичених зв’язків у молекулах ліпідів, що забезпечує пристосування його до холоду або жари залежно від середовища їхнього мешкання. Більш того, це співвідношення змі-нюється для різних ділянок тіла одного й того ж організму. Наприклад [21], температура ноги біля копита полярного оленя може становити мі-нус 20 °С, а температура ноги біля тулуба досягає +30 °С. Клітинні
131
мембрани не зазнають фазового переходу, оскільки мембрани клітин бі-ля копита містять більше ненасичених ліпідів, а біля тулуба – більше насичених. Відомо, що тваринні жири за кімнатної температури зазви-чай перебувають у твердому стані, а рослинні навпаки – в рідкому. Це пояснюється тим, що в тваринних клітинах менше ненасичених ліпідів, ніж у рослинних.
Одним з найпоширеніших методів вивчення фазових переходів у мембранах є метод мікрокалориметрії, який дозволяє визначити кіль-кість теплоти Q, яка була поглинена під час плавлення речовини, що мі-стить ν молів ліпідів. Знаючи Q, можна розрахувати питому ентальпію плавлення: Н = Q/.
Таким чином, плавлення речовини відбувається за такої температу-ри Тпл, для якої енергія Гібса в твердому стані (Gтв = Нтв – TплSтв) дорів-нює енергії Гібса в рідкому стані (Gр = Нр – ТплSр).
Біофізика клітини вивчає фізико-хімічні основи функціювання клітини, будову й основні функції біологічних мембран (поверхневої плазматичної мембрани та мембран внутрішньоклітинних органоїдів): їх проникненості, каталітичну активність, електро- та хімозбудливість, також енергетичні процеси клітини, її механічні. Електричні властивості;
вивчення структури клітин і фізико-хімічні прояви - проникність, утворення биопотенциалов