Материал: 9. Біофізика клітин
Біологічні мембрани
Термодинаміка рівноважних систем ґрунтується на принципах, які певною мірою ідеалізовані. Біологічні об’єкти не перебувають у стані рівноваги. Процеси, що відбуваються в таких системах, є необоротними. Термодинаміка нерівноважних процесів грунтується на таких принци-пах і поняттях, як лінійні співвідношення, вироблення ентропії, стаціо-нарний стан, теорема Пригожина.
Структурною і функціональною одиницею живого організму є клі-тина. Клітини обмінюються з навколишнім середовищем, речовиною, енергією та інформацією. Енергія живильних речовин, що надходять у клітину, витрачається на виконання різних робіт у ній та різних функ-цій. В будові клітини та її функціонуванні надзвичайно велику роль ві-діграють мембрани.
Біологічними мембранами називають функціональні структури клі-тин, товщина яких становить декілька молекулярних шарів (10 нм), які обмежують цитоплазму та більшість внутрішньоклітинних структур. Мембрани не є пасивними напівпроникними оболонками. Вони беруть дуже важливу участь в усіх функціях клітини.
3.4.1. Функції, структура та властивості біологічних мембран
Усі біологічні мембрани мають загальні структурні фрагменти. Во-ни є ансамблями ліпідних та білкових молекул, що утримуються разом за допомогою невалентних взаємодій. Товщина біологічних мембран становить 5…10 нм, проте їх частка в сухій масі клітин перевищує 50 %. Це пояснюється щільним пакованням компонентів мембран, а також їх
119
великою сумарною площею. Основа структури мембрани – ліпідний бішар товщиною близько 5 нм. Клітинна мембрана містить ліпіди трьох типів: фосфоліпіди, холестерол та гліколіпіди. Усі вони є амфіпатични-ми молекулами, тобто мають гідрофільну та гідрофобну частини (рис. 3.7), які подані чотирма основними фосфоліпідами мембран тва-ринних клітин.
Фосфоліпіди мають полярну ліофільну головку (яка добре взаємодіє з
полярними розчинниками, зокрема з водою), заряджену негативно, і два гі-
дрофобні вуглеводневі хвос-
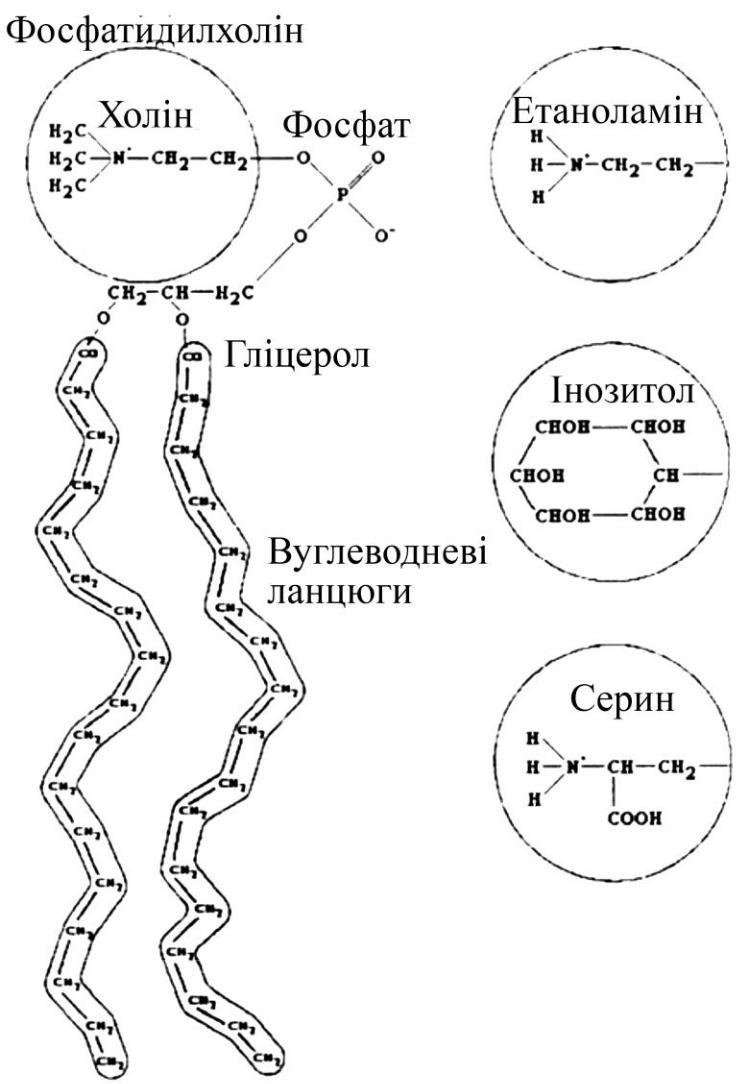
ти (що не взаємодіють з во-
дою). Один з хвостів зазви-
чай має одну або більше
подвійних зв’язків (ненаси-
чена жирна кислота), тоді як
інший хвіст подвійних
зв’язків не має (насичена
Рис. 3.7. Хімічна структура чотирьох основних фосфоліпідів, які містяться в плазматичних мембранах
жирна кислота). Гідратовані ліпідні си-
стеми стабілізуються зде-більшого в результаті гід-рофобних взаємодій, а та-кож за допомогою вандер-
ваальсових сил між
сусідніми гідрофобними ланцюгами та водневими зв’язками між полярними головками деяких ліпідів.
Під дією гідрофобних сил система набуває такої структурної організації, за якої неполярні ділянки
120
Рис. 3.8. Міцела
Паковання молекул води складніше, але відомо, що воно стабілізу-ється міжмолекулярними водневими зв’язками. У разі потрапляння не-полярної молекули у воду порушується структура води навколо кожної молекули. Молекули води прагнуть орієнтуватися так, щоб збереглися міжмолекулярні водневі зв’язки. Таким чином, молекулам води дово-диться набувати вищого ступеня впорядкованості (створювати структу-ру). Це призводить до зменшення ентропії системи. В результаті сумар-на зміна вільної енергії для перенесення неполярної молекули з неполярного розчинника у воду термодинамічно невигідна через ентро-пійні ефекти, зумовлені порушенням структури води як розчинника. Термодинамічна невигідність взаємодії неполярних молекул з водою і є проявом гідрофобних сил.
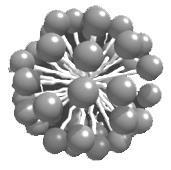
-
водному розчині ліпіди, що мають один жирнокислотний залишок, утворюють міцели (рис. 3.8), а в мембрані – гідрофільні пори, через які здатні проходити молекули води та іони, для яких в нормі проникність мембрани мала. Зміна
проникності мембрани для речовин може приз-
вести до порушення функціонування та загибель клітини. Іонізувальне випромінювання підсилює процеси перекисного окиснення ліпідів, а отже, сприяє утворенню пор, що є одним з механізмів ураження клітини під дією випромінювання. У результаті утворюється подвійний шар (бішар), в якому жирнокислотні хвости розміщені всередині шару, а по-лярні головки напрямлені назовні. Такі мембрани формують замкнені бульбашки – ліпосоми (або мультиламелярні везикули рис. 3.9), а також стабільні плоскі подвійні шари.
Ліпосоми використовують передусім як модельні системи, в які можна вбудовувати різні білки, а також у фармакології для створення
121
систем транспортування лікарських препаратів в уражені тканини. Лі-карську речовину поміщають у таку ліпідну капсулу для уникнення ро-збавлення в крові.
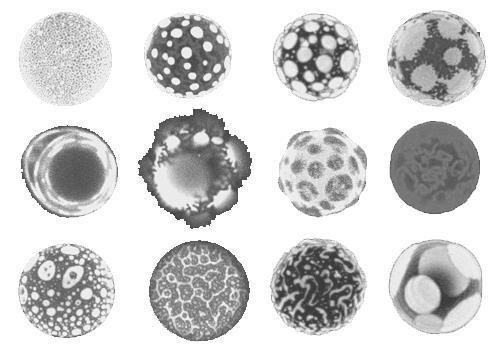
Рис. 3.9. Зовнішній вигляд сферичних ліпосом
Ліпіди активно беруть участь у процесах, що перебігають у мем-бранах. Вони утворюють стабільний бішар, у якому функціонують біл-ки; деякі ліпіди беруть участь у процесах біосинтезу, інші – є важливи-ми біорегуляторами; окремі ліпіди потрібні для підтримання активності ряду ферментів.
Гангліозиди, наприклад, відіграють важливу роль у регуляції зрос-тання клітин, є специфічними рецепторами плазматичних мембран і ві-дповідальні за клітинну адгезію.
Мембрани містять велику кількість різних білків. Їх кількість така ве-лика, що поверхневий натяг мембрани ближчий до величини поверхнево-го натягу на межі розділу білок–вода (10–4 Н/м), ніж ліпід–вода (10–2 Н/м). Концентрація мембранних білків залежить від виду клітини.
Білки, що входять до складу мембран за їх положенням у мембрані поділяють на периферичні (зовнішні) та інтегральні (які проникають у мембрану). Багато мембранних білків є трансмембранними і повністю
122
пронизують ліпідний бішар. Периферічні білки зв’язані з поверхнею мембрани слабкими електростатичними взаємодіями з полярними го-ловками ліпідних молекул, або з молекулами інших білків. Інтегральні білки зв’язуються з ліпідами переважно невалентними гідрофобними взаємодіями. Проте є приклади ковалентного зв’язку мембранних білків ліпідами. Багато білків плазматичних мембран рослинних і тваринних клітин (наприклад, глікофорин) належать до класу глікопротеїнів. Вуг-леводневі залишки цих білків розміщені із зовнішнього боку плазма-тичної мембрани.
За функціональними характеристиками можна виділити структурні транспортні, регуляторні, ферментативні, рецепторні білки та ін. Саме білки забезпечують унікальність функцій кожної мембрани. З фермен-тативних білків, головними є аденозинтрифосфорні кислоти (АТФ). Крім них, у мембранах окремих клітин можуть бути інші ферменти (флавіни, цитохроми, дегідрогеназа тощо), які беруть активну участь у метаболізмі клітин. Співвідношення між кількістю білків та ліпідів у мембрані неоднакове і залежить від функціонального призначення клі-
|
тини. Так, у мембранах еритроцитів |
Білок |
|
|
|
|
|
|
75 % площі займають ліпіди, а 25 % – |
Ліпід |
|
|
білки. У мембранах деяких бактерій |
|
|
|
|
|
|
|
білків у 5–6 разів більше, ніж ліпідів, а |
Білок |
|
|
|
|
|
|
в мієліновій мембрані навпаки – білків |
а |
|
|
у 2,6 разу менше, ніж ліпідів. |
|
|
|
Ще в 1925 р. Гортер і Грендел припу- |
|
|
|
стили, що ліпіди в мембрані еритроцитів |
|
|
|
утворюють бімолекулярний шар. Ця кон- |
|
|
|
цепція була надалі розвинута в запропо- |
б |
|
|
нованій в 1935 р. моделі Девсона–Данієлі, |
|
|
|
Рис. 3.10. Моделі структурної |
|
|
|
або моделі «сендвіча», в якій передбача- |
|
|
|
організації біологічних мембран: |
|
|
|
лося, що білки покривають поверхню лі- |
а – модель Девсона–Данієлі; |
|
|
б – модель рідинно-мозаїчної |
|
|
|
підного бішару (рис. 3.10, а). Експеримен- |
|
|
|
мембрани Сингера та Ніколсона |
|
|
|
|
123 |
|
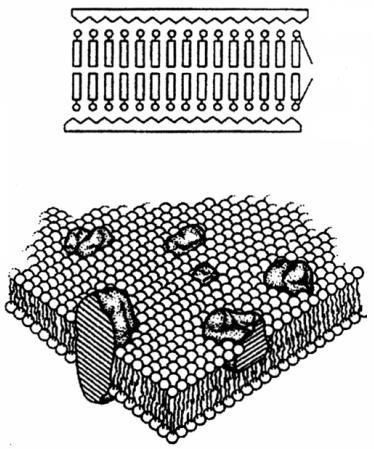
тальні дані, отримані за допомогою дифракції рентгенівських променів і електронної мікроскопії, підтвердили її адекватність [35; 38].
Проте електронно-мікроскопічні дослідження із застосуванням ме-тоду заморожування–сколювання показали, що в мембрани вбудовані глобулярні частинки – білки. Причому для мембранних білків характер-ний високий вміст α-спіралей, і вони утворюють глобули, а не поділя-ються у вигляді моношару на поверхні ліпідного бішару.
-
1972 р. Сингер та Ніколсон створили рідинно-мозаїчну модель. Мембрана цієї моделі являє собою плинний фосфоліпідний бішар, у який занурено вільно дифундувальні білки (рис. 3.10, б).
Отже, згідно із сучасними уявленнями [24] клітинні мембрани є мо-заїчними структурами, що містять у замкненому подвійному шарі ліпід-ні молекули, орієнтовані білкові молекули, гліколіпіди, глікопротеїни та полісахариди.
Біофізика мембран вивчає структуру біологічних мембран, транс-порт речовин через них, генерацію та поширення нервового імпульсу, процеси рецепції та перетворення енергії, більшість яких перебігають на біомембранах.
Біологічні мембрани виконують в організмі такі функції: обмежу-ють клітину (плазмалеми) і клітинні органели, які розділяють клітину на окремі ділянки (компартаменти), що дозволяє підтримувати нерівно-важний стан організму; формують міжклітинні контакти; забезпечують механічний захист клітин, виборчий і регульований транспорт речовин, проведення нервового імпульсу; беруть участь у синтезі АТФ, забезпе-чують оптимальне розміщення в просторі мембранних білків, а також роботу рецепторів та імунної системи.
3.4.2. Динаміка біологічних мембран
За фізіологічних температур ліпідний бішар мембрани перебуває в рідкокристалічному стані. З одного боку, мембрана має властивості рі-дини – плинність, лабільність (її окремі компоненти рухомі), а з другого
124
боку, зберігає високий ступінь упорядкованості ліпідних молекул (вони ро-зміщені в два шари і вуглеводневі хвости витягнуті), що характерно для твердих кристалів. У межах кожного шару можливий великий або менший ступінь упорядкованості. Відповідно до дифракційної картини бішар скла-дається з численних кристалітів (добре пакованих ділянок) розмірами близь-ко сотень ангстремів, орієнтація яких дещо відрізняється від орієнтації су-сідніх кристалів. Такі утворення мають динамічний характер та видозмі-нюються з плином часу. Поєднання високої впорядкованості з плинністю і лабільністю забезпечує виконання мембранами їх основних функцій.
Рух ліпідних молекул може бути паралельним та поперечним до поверхні мембрани. Рух, паралельний поверхні, – латеральна дифузія. Це рух у двовимірному просторі бішару, зміна орієнтації полярних го-ловок, коливання жирнокислотних ланцюгів, а також обертальна рухо-мість навколо довгої осі. Поперечний рух – повільний обмін компонен-тами моношарів (фліп-флоп), за якого молекула має не тільки переміститися в інше місце, але й повернутися, оскільки її полярна го-ловка повинна бути напрямлена в протилежний бік.
Коефіцієнт
латеральної дифузії для ліпідів D
= 108…107
см2/с,
його значення залежить від складу
мембран і температури. З погляду
моле-кулярного руху для інтерпретації
експериментальних даних використо-вують
деякі прості моделі руху мембранних
компонентів. Поступальна хода ліпідних
та білкових молекул подібна до двовимірної
дифузії. Ізот-ропна двовимірна дифузія
характеризується середньоквадратичним
пе-реміщенням, що відбувається за час
t:
xñåð.êâ
2
 Dt
,
де
D –
коефіцієнт
ізотропної дифузії.

У цьому випадку молекула переміщується за одну секунду на відс-тань 2 мм у середовищі з дифузією Dліп 10–8 см2/с.
Частота перескоків молекул (с–1) унаслідок латеральної дифузії
-
2

 3
DS
, де D
– коефіцієнт латеральної дифузії; S
– площа однієї мо-
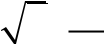
125
лекули на поверхні мембрани. Для молекул ліпідів S = 6.10 107 с–1.
|
Час осілого життя молекули в одному положенні |
1 |
|
|
|
|
|
|
|
|

-5 см2, тоді ν =
|
|
A |
. |
|
|
3D |
|
||
|
2 |
|
|
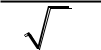
Отже, середній час одного перескоку t = 10–7 с. Час обертального руху фосфоліпідів у природних мембранах t = 10–6 с.
Рухливість молекул білків у мембрані трохи менша. Коефіцієнти латеральної дифузії для білків: Dбіл = 10–2…10–10 см2/с, обертальна рух-ливість білків характеризується часом tоб = 10–6…10–4 с.
Приклад 3.1. Знайдіть середню величину зміщення молекули формаміду у воді та у розчині сахарози за 1 хв, якщо коефіцієнти дифузії цієї речовини у воді й саха-розі відповідно становлять 1,6.10–5 і 0,3.10–5 см2.с–1.
Розв’язання:
Середньоквадратичне переміщення молекул:
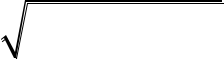
|
S |
ñåð1 |
2 |
D2 |
1,6 109 60 0,619 |
|
|
|
|
1 |
|
|

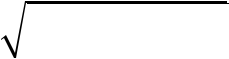
мм;
Sñåð2
2
 D2
2

 0,3109
60
0, 268 мм.